Эволюция шипов у колюшек связана с изменениями регуляторных участков Hox-генов

Hox-гены играют важную роль в разметке эмбриона вдоль передне-задней оси и в определении путей развития повторяющихся частей тела у двусторонне-симметричных животных. Мутации Hox-генов могут сильно изменить морфологию организма, однако гипотеза о важной эволюционной роли таких мутаций остается спорной. Если она верна, то различия в Hox-генах должны влиять на внутривидовую изменчивость по важным для выживания признакам в природных популяциях. Доказанные случаи такого влияния пока единичны. Биологи из США и Канады показали, что у двух видов колюшек, относящихся к разным родам, внутривидовая изменчивость по важному адаптивному признаку — числу колючек на спине — связана с аллельными вариантами одного и того же регуляторного участка ДНК в Hox-кластере HOXDB. Нуклеотидные различия, влияющие на число шипов, у двух видов разные, что говорит о независимой (параллельной) эволюции адаптивного признака за счет изменений одного и того же участка ДНК. В обоих случаях генетическая изменчивость влияет на положение передней границы области экспрессии Hox-генов, входящих в кластер HOXDB. Это, в свою очередь, влияет на судьбу зачатков костных шипов, формирующихся в спинной плавниковой складке у мальков. Результаты подкрепляют гипотезу о важной эволюционной роли мутаций регуляторных участков Hox-генов. Подвижные костные шипы, возможно, являются основой эволюционного успеха разнообразнейшей группы рыб Acanthomorpha, к которой относится почти треть современных видов позвоночных.
«Элементы» много рассказывали о Hox-генах — важнейших регуляторах индивидуального развития животных (см. ссылки в конце новости). Hox-гены появились еще у общих предков книдарий и билатерий. Их исходной функцией, вероятно, была разметка развивающегося организма вдоль передне-задней оси и определение идентичности (судьбы) повторяющихся частей тела — метамеров (см.: Развитие «сегментов» у книдарий контролируется Hox-генами, как у билатерий, «Элементы», 01.10.2018). В дальнейшем Hox-гены задействовались («кооптировались») для выполнения похожих задач на более поздних стадиях развития. Например, Hox-гены участвуют в формировании пальцев, которые тоже являются повторяющимися структурами, расположенными вдоль передне-задней оси (большие пальцы — передние; см.: Идеи Алана Тьюринга помогли понять механизм развития пальцев у позвоночных, «Элементы», 18.12.2012).
Мутации, затрагивающие работу Hox-генов, иногда приводят к радикальным преобразованиям, в основе которых лежит смена идентичности частей тела (см. Homeosis). Например, третий грудной сегмент мухи может посчитать себя вторым, и тогда на нем вместо жужжалец вырастут крылья. Подобные факты наводят на мысль, что мутации Hox-генов (или регуляторов более высокого уровня, которые контролируют работу Hox-генов) могут играть важную роль в эволюции животных. Косвенно это подтверждается тем, что в группах с различающимися планами строения нередко обнаруживаются различия в Hox-генах, которые выглядят логично с точки зрения функций этих генов (два примера рассмотрены в новостях: Укорочение тела тихоходок связано с потерей Hox-генов, «Элементы», 04.03.2016); Эволюция ящериц и змей сопровождалась изменениями Hox-генов, «Элементы», 15.03.2010).
С другой стороны, Hox-гены и паттерны их экспрессии весьма консервативны (не склонны быстро меняться в ходе эволюции), а гомеозисные мутации, как правило, снижают приспособленность организмов. Это можно рассматривать как аргумент против гипотезы о важной эволюционной роли мутаций Hox-генов. Кроме того, пока мало доказанных случаев вовлеченности Hox-генов в изменения на микроэволюционном уровне (один такой случай описан в новости Изменение регуляции одного из Hox-генов привело к развитию мимикрирующей окраски у шмелей Bombus melanopygus, «Элементы», 01.08.2019).
В новой статье, опубликованной в журнале Nature Ecology & Evolution, биологи из США и Канады продемонстрировали еще один красивый пример того, как изменения регуляторных участков Hox-генов влияют на изменчивость по важному адаптивному признаку в природных популяциях.
Объектами исследования были два вида колюшек: хорошо изученная трехиглая колюшка Gasterosteus aculeatus, модельный объект эволюционных исследований (см. ссылки в конце новости), и четырехиглая колюшка Apeltes quadracus. Хотя число колючек на спине входит в названия обеих рыбок (английские, русские, а в одном из двух случаев и латинское), этот признак у них подвержен внутривидовой изменчивости (рис. 1) и быстро эволюционирует под действием отбора. Направленность отбора зависит от локальных условий, поэтому популяции одного и того же вида, живущие в разных водоемах, могут сильно различаться по частоте встречаемости особей с разным числом шипов. Колючки хорошо защищают колюшек от небольших хищных рыб, особенно если в водоеме мало укрытий, но снижают маневренность и, возможно, делают рыбок более легкой добычей для хищных насекомых, которым удобно хватать колюшек за колючки. Поэтому, например, морские популяции трехиглой колюшки, как правило, более колючи, чем пресноводные, ведь в море нет хищных насекомых и мало укрытий.
Чтобы разобраться в генетике внутривидовой изменчивости по числу и длине колючек у Gasterosteus aculeatus, исследователи скрестили пресноводную самку из озера Болтон (Boulton) в Британской Колумбии с морским самцом, пойманным у берегов Калифорнии. У самца было три шипа на спине, у самки — два (как и у 80% ее сородичей из озера Болтон; у остальных 20% по три шипа). Во втором поколении гибридного потомства (F2) у большинства рыбок (563 из 590) было три шипа, как у дедушки, у шести — два, как у бабушки, а у 21 — четыре шипа.
Рыбок генотипировали, то есть определили аллельное состояние примерно полутора тысяч полиморфных локусов (однонуклеотидных полиморфизмов), разбросанных по всему геному. Особей с двумя шипами оказалось слишком мало для серьезного анализа (то есть для поиска статистически значимых ассоциаций между генотипом и фенотипом). Для вариантов «три шипа» и «четыре шипа» удалось выявить участок на конце шестой хромосомы, аллельное состояние которого достоверно влияет на этот признак, объясняя 6% изменчивости. Этот локус влияет также и на признак «длина второй колючки» (DS2 на рис. 1), объясняя 8% изменчивости. Аллель, повышающий вероятность того, что у рыбки будет четыре (а не три) шипа, и при этом шип DS2 будет коротким, происходит от двухиглой пресноводной бабушки (ну а то, что в озере Болтон нет четырехиглых особей, говорит о контекстозависимом проявлении этого аллеля, то есть об эпистазе).
Выявленный локус содержит один из Hox-кластеров, а именно HOXDB. Здесь стоит пояснить, что у билатерий изначально был только один кластер Hox-генов, но у позвоночных в результате двух полногеномных дупликаций их стало четыре, а у костистых рыб произошла еще одна дупликация, которая довела базовое число Hox-кластеров до восьми (см: Функциональный анализ генома ланцетника проливает новый свет на эволюцию позвоночных, «Элементы», 26.11.2018). Лишние кластеры могут теряться в отдельных линиях, но в целом рост их числа должен был открыть широкие возможности для эволюции разнообразных структур, расположенных вдоль передне-задней оси, таких как колючки рыб из группы Acanthomorpha.
Кластер HOXDB у колюшек включает три Hox-гена: HOXD4B, HOXD9B, HOXD11B. На ранних стадиях эмбрионального развития, когда формируются основные органы и отделы тела вдоль передне-задней оси, эти гены экспрессируются в характерной для Hox-генов «ступенчатой» манере: чем больше порядковый номер гена, отражающий его положение в кластере, тем дальше от переднего конца тела располагается передний край области его экспрессии (рис. 2, вверху).
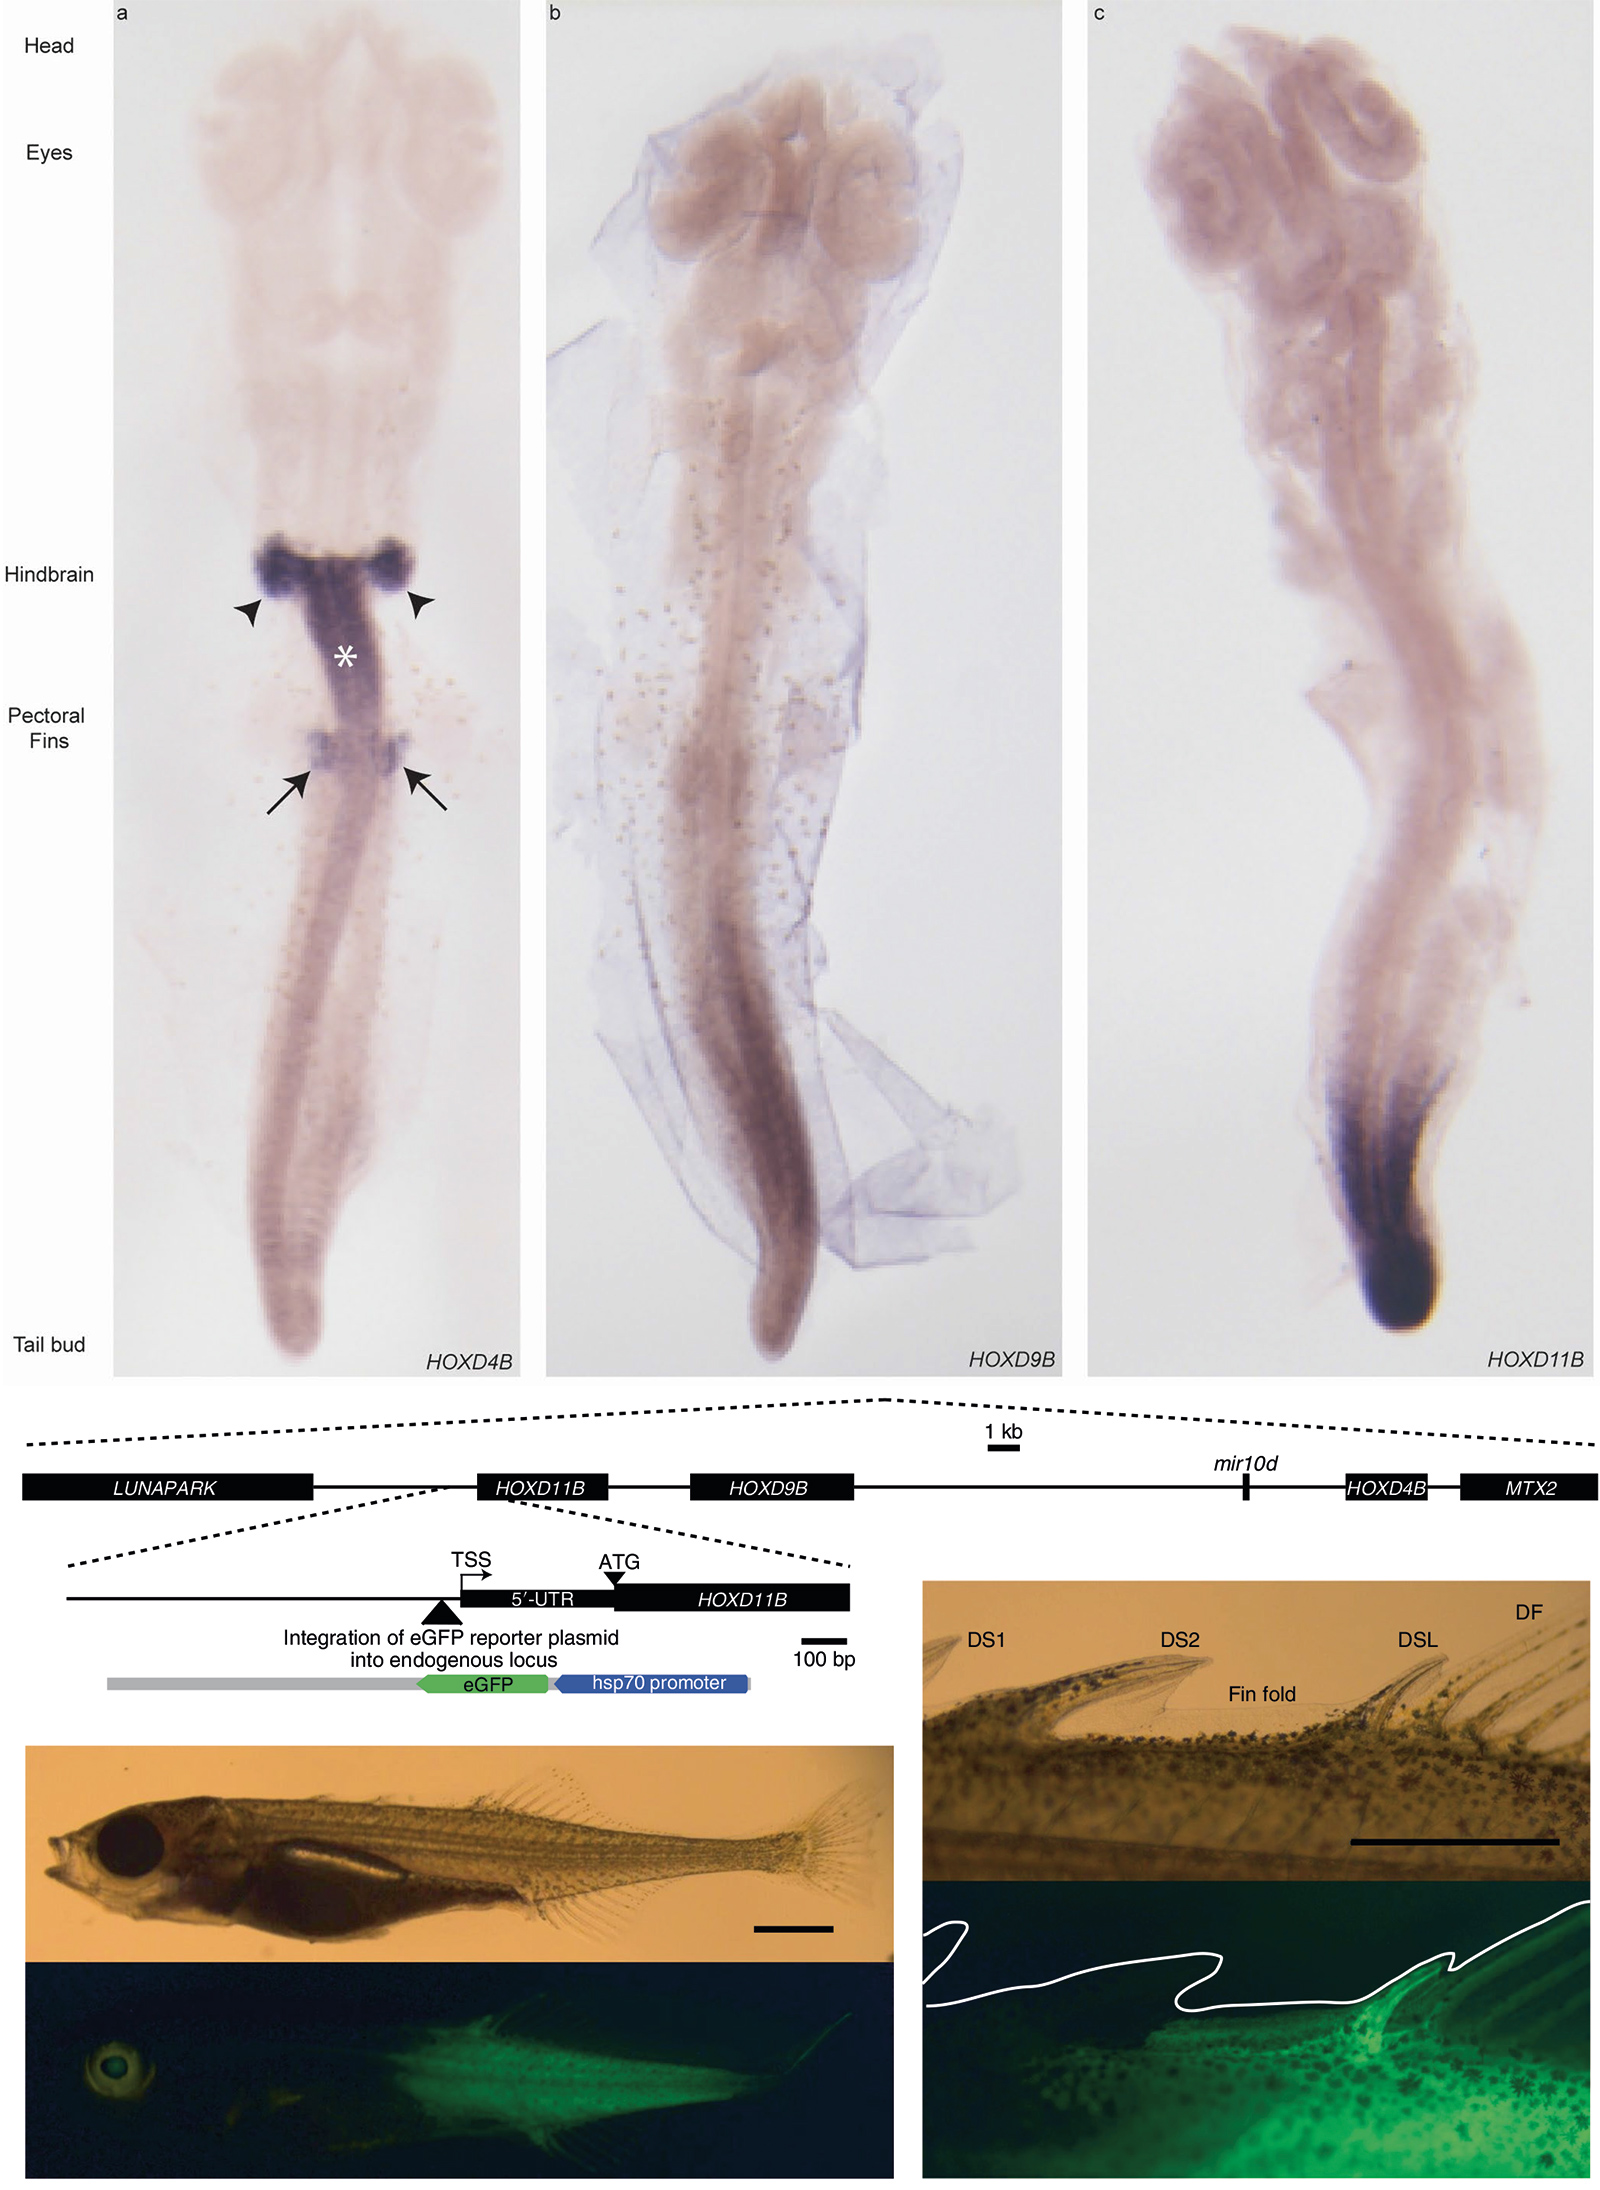
Рис. 2. Вверху: области экспрессии генов HOXD4B, HOXD9B и HOXD11B на ранних стадиях развития (задолго то формирования спинных шипов). Внизу: экспрессия HOXD11B на поздней стадии, когда формируются шипы. Длина масштабных отрезков — 1 мм. Изображения из обсуждаемой статьи в Nature Ecology & Evolution
На этой стадии гены HOXDB, очевидно, выполняют свою древнюю функцию, участвуя в передне-задней разметке эмбриона. Спинные шипы формируются значительно позже, при длине тела малька около 1 см (рис. 2, внизу). В это время, как выяснилось, у трехиглых особей ген HOXD11B экспрессируется в задней части спинной плавниковой складки, в том числе в заднем шипе (DSL), но не в двух передних шипах (DS1 и DS2). Такой рисунок экспрессии HOXD11B согласуется с предположением о том, что этот ген влияет на судьбу развивающихся шипов. Например, можно предположить, что там, где он экспрессируется, шип получается коротким (как DSL), а где не экспрессируется — длинным (как DS2).
Чтобы лучше разобраться в этом, исследователи поставили еще несколько сложных экспериментов. В частности, они генно-инженерными методами повреждали белок-кодирующую часть гена HOXD11B, внося в нее случайные мутации. Выяснилось, что число шипов от этого не меняется, зато последний шип (DSL) становится длиннее.
Была также изучена экспрессия генов HOXDB у гибридов первого поколения от скрещивания четырехиглых особей (с «болтонским» аллелем кластера HOXDB) с трехиглыми рыбками — обладателями аллеля, ассоциированного с трехиглостью. Оказалось, что аллельные различия не влияют на экспрессию HOXDB на ранних эмбриональных стадиях. Однако на поздних стадиях, когда идет закладка шипов, передний край области экспрессии всех трех генов «четырехиглого» (болтонского) варианта кластера HOXDB сдвигается вперед по сравнению с аллелем, типичным для трехиглых особей. У гетерозиготных четырехиглых рыбок в передних трех шипах (DS1, DS2, DS3) экспрессия болтонского («четырехиглого») аллеля выше, чем «трехиглого» аллеля, а в заднем шипе (DSL) и спинном плавнике уровни экспрессии обоих аллелей одинаковы.
Это значит, что то изменение, которое отличает болтонский «четырехиглый» аллель от обычного «трехиглого», сдвигает переднюю границу области экспрессии HOXDB вперед. Авторы предполагают, что это меняет идентичность зачатков шипов, заставляя передние шипы развиваться по более «задней» программе. Такое эволюционное изменение онтогенеза называют постериоризацией. Например, шип DS2 укорачивается по той причине, что ощущает себя немного шипом DSL, которому положено быть коротким. Костная пластинка (птеригиофор), расположенная у трехиглых особей между шипами DS2 и DSL, начинает считать себя основанием шипа DSL, и на ней вырастает дополнительный шип DS3, похожий на DSL.
Аналогичные эксперименты были проведены с четырехиглой колюшкой Apeltes quadracus, у которой тоже есть внутривидовая изменчивость по числу шипов (рис. 1, справа). Обычно у этого вида четыре спинных шипа, но в некоторых популяциях преобладают особи с тремя или пятью шипами. Большее число шипов коррелирует с высокой численностью хищных рыб, меньшее — с обилием водной растительности, где колюшкам удобно прятаться.
Оказалось, что у A. quadracus изменчивость по числу шипов тоже связана с аллельными вариантами локуса HOXDB, но с другими — не такими, как у G. aculeatus. Это говорит о независимом вовлечении одного и того же Hox-кластера в эволюцию шипов у двух разных родов колюшек.
Авторам удалось выявить конкретный участок кластера HOXDB, который, по-видимому, играет ключевую роль в формировании изменчивости шипов в обоих случаях. Им оказался консервативный (то есть медленно меняющийся в ходе эволюции, а значит, функционально важный) некодирующий участок, расположенный между генами HOXD11B и HOXD9B. Исследователи назвали его «осевым энхансером» (axial enhancer, AxE). К нему, вероятно, прикрепляются какие-то регуляторные белки (транскрипционные факторы), подавляющие экспрессию HOXDB.
У A. quadracus главное различие между генотипами, ассоциированными с большим и малым числом шипов, состоит в том, что у первых в определенном месте энхансера AxE два стоящих рядом нуклеотида GG (это эволюционно исходный вариант, соответствующий малому числу шипов) заменились на AA (производный вариант, соответствующий большому числу шипов). Генотипирование 332 особей A. quadracus из двух природных популяций, где преобладают особи с четырьмя и пятью шипами, показало, насколько сильна эта связь: у особей, гомозиготных по аллелю GG, спинных шипов в среднем 4,2, а у гомозигот по аллелю AA — 5,1.
Замена GG на AA создает в энхансере AxE новый участок, похожий на сайт связывания гомеодоменного регуляторного белка (см. Homeobox). Возможно, к этому сайту прикрепляется белок, кодируемый каким-то Hox-геном, что приводит к снижению экспрессии HOXDB в передней части тела малька во время развития шипов (Hox-генам свойственна сложная взаимная регуляция с положительными и отрицательными обратными связями). В результате область поздней экспрессии HOXDB смещается назад, и происходит «антериоризация». Шипов становится больше, потому что зачатки птеригиофоров, располагающихся перед DSL, начинают развиваться по программе передних шипов.
Что касается Gasterosteus aculeatus, то у этого вида тоже есть энхансер AxE, но не у всех особей, а только у носителей «обычного» аллеля, ассоциированного с трехиглостью. «Болтонский» аллель, ассоциированный с четырехиглостью, отличается отсутствием (делецией) энхансера AxE, а также двумя вставками (мобильного элемента LINE и эндогенного ретровируса). Энхансер AxE, по-видимому, снижает экспрессию HOXDB в передней части малька, поэтому его утрата ведет к расширению области экспрессии в переднем направлении и к общей «постериоризации» шипов.
Итоговая схема, отражающая наиболее правдоподобную, по мнению авторов, интерпретацию полученных данных, показана на рис. 3.
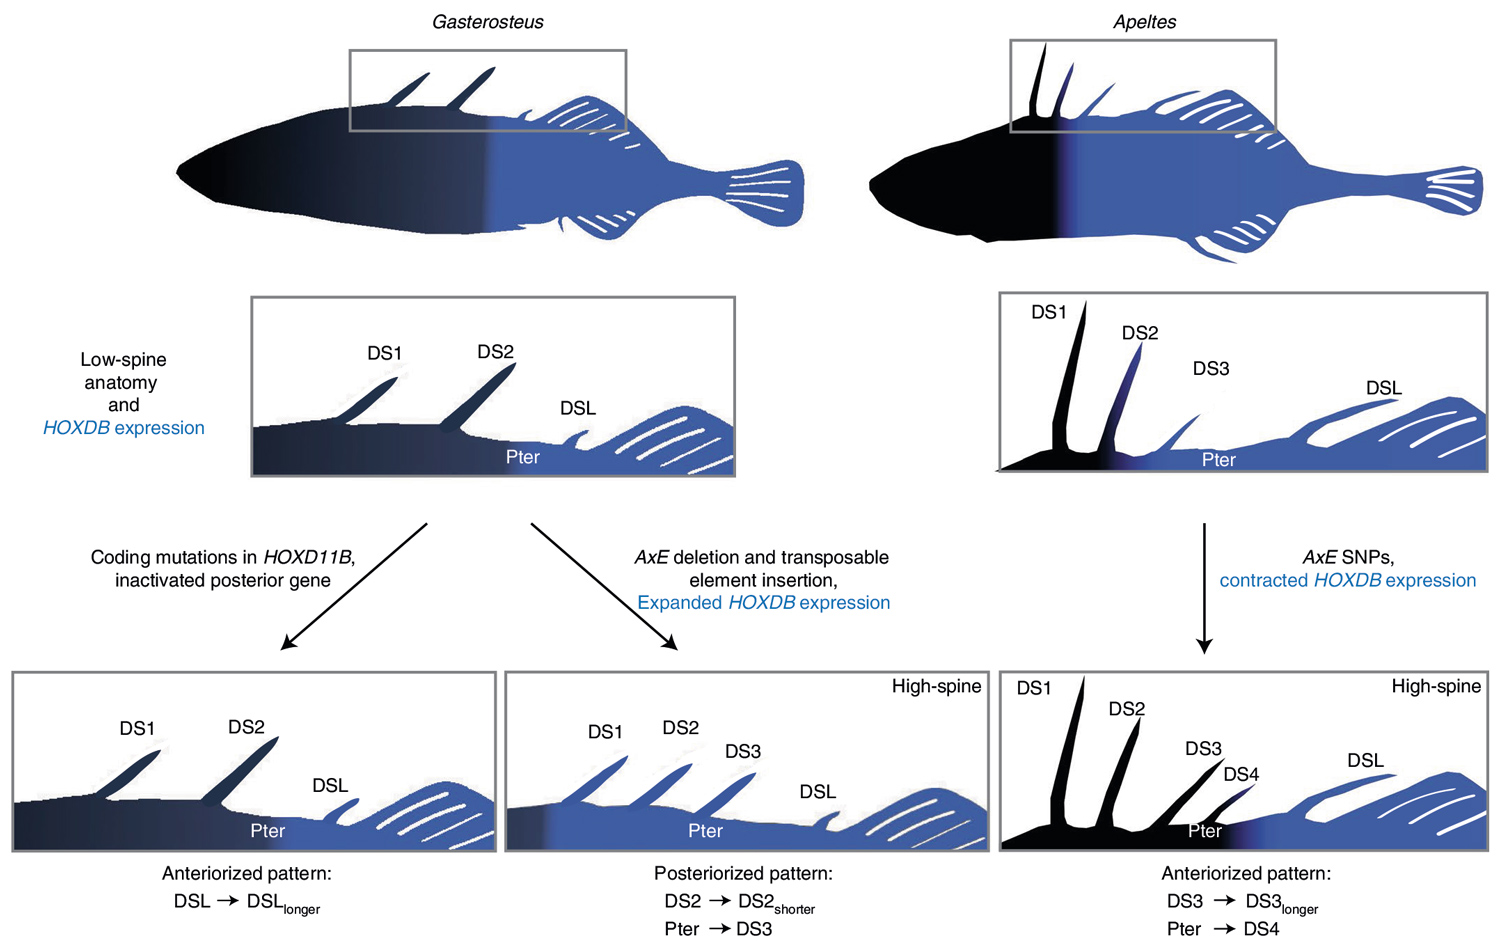
Рис. 3. Схема влияния различий в локусе HOXDB на строение спинных шипов у Gasterosteus (слева) и Apeltes (справа). Синим показана область экспрессии HOXDB в период формирования шипов. Pter — птеригиофор, костная пластинка, на которой может развиться, а может и не развиться подвижный шип. Рисунок из обсуждаемой статьи в Nature Ecology & Evolution
У Gasterosteus повреждение белок-кодирующей части гена HOXD11B (самого «заднего» из трех генов кластера) нарушает функцию кодируемого им белка, что ведет к частичной антериоризации. Проявляется это в том, что задний шип DSL становится длиннее (что делает его более похожим на передние шипы; рис. 3, внизу слева).
У носителей «болтонского» аллеля утрата энхансера AxE расширяет область экспрессии HOXDB в переднем направлении, что ведет к постериоризации. Это проявляется в укорочении шипа DS2 и появлении дополнительного шипа DS3, потому что соответствующие зачатки теперь развиваются по программе, более похожей на программу развития DSL (рис. 3, внизу в центре).
У Apeltes длина спинных шипов по направлению от головы к хвосту сначала уменьшается, а потом снова растет. По-видимому, наименьшее развитие шипов характерно для окрестностей передней границы области экспрессии HOXDB. Замена GG на AA в энхансере AxE сдвигает эту границу назад. Это ведет к антериоризации, которая в данном случае проявляется в удлинении шипа DS3 и появлении DS4 (рис. 3, внизу справа).
Конечно, эта схема крайне упрощена и идеализирована (да и не бесспорна). Ясно, что в формировании спинных шипов у колюшек задействовано множество других генов и регуляторных взаимодействий. Тем не менее, исследование убедительно подтвердило старую гипотезу о том, что изменения регуляторных участков Hox-генов могут вносить весомый вклад в эволюцию адаптивных признаков у позвоночных.
К сказанному нужно добавить, что подвижные костные шипы у рыб — вовсе не пустяк для эволюции земной жизни. Эти шипы — важное эволюционное «ноу-хау» Acantomorpha — исключительно успешной группы костистых рыб, к которой относится более 14 000 видов, то есть примерно треть современных видов позвоночных. Не исключено, что полногеномная дупликация, обеспечившая костистых рыб дополнительными Hox-кластерами, сильно облегчила процесс вовлечения Hox-генов в формирование и диверсификацию таких шипов.
Источник: Julia I. Wucherpfennig, Timothy R. Howes, Jessica N. Au, Eric H. Au, Garrett A. Roberts Kingman, Shannon D. Brady, Amy L. Herbert, Thomas E. Reimchen, Michael A. Bell, Craig B. Lowe, Anne C. Dalziel and David M. Kingsley. Evolution of stickleback spines through independent cis-regulatory changes at HOXDB // Nature Ecology & Evolution. DOI: 10.1038/s41559-022-01855-3.
См. также об эволюционной роли Hox-генов:
1) Новое в науке о знаменитых Hox-генах, регуляторах развития, «Элементы», 10.10.2006.
2) Эволюция ящериц и змей сопровождалась изменениями Hox-генов, «Элементы», 15.03.2010.
3) Своим сердцем позвоночные обязаны полногеномной дупликации, «Элементы», 17.06.2013.
4) Hox-гены оказались более эволюционно изменчивы, чем предполагалось раньше, «Элементы», 12.10.2013.
5) Дупликация гомеобоксных генов могла быть одной из причин кембрийского взрыва, «Элементы», 13.02.2015.
6) Укорочение тела тихоходок связано с потерей Hox-генов, «Элементы», 04.03.2016.
7) Развитие «сегментов» у книдарий контролируется Hox-генами, как у билатерий, «Элементы», 01.10.2018.
8) Изменение регуляции одного из Hox-генов привело к развитию мимикрирующей окраски у шмелей Bombus melanopygus, «Элементы», 01.08.2019.
9) Для усложнения строения грудных плавников данио-рерио достаточно замены одного нуклеотида, «Элементы», 20.02.2021.
О колюшках:
1) Направленность эволюции колюшек зависит от наличия убежищ, «Элементы», 17.06.2011.
2) Экспериментально подтверждено влияние видообразования на свойства экосистем, «Элементы», 06.04.2009.
3) Репродуктивная изоляция у колюшек возникает благодаря пластичному «волшебному признаку», «Элементы», 25.12.2019.
4) Ломкие сайты хромосом предопределяют параллельную эволюцию у трехиглой колюшки, «Элементы», 23.01.2019.

Трехиглые колюшки
-
 14.09.2022Эволюция шипов у колюшек связана с изменениями регуляторных участков Hox-геновАлександр Марков • Новости науки
-
 14.10.2016На предпочтения колюшек влияют свободные аминокислотыАлексей Опаев • Новости науки
-
 10.03.2008Старение и рак – наследие колониальных предковЕлена Наймарк • Журнал общей биологии • №1, 2008
Последние новости



Рис. 1. Изменчивость по числу спинных шипов у трехиглой колюшки Gasterosteus aculeatus (слева, число шипов варьирует от 2 до 4) и четырехиглой колюшки Apeltes quadracus (справа, от 2 до 6 шипов). Длина масштабных отрезков — 5 мм. Фото из дополнительных материалов к обсуждаемой статье в Nature Ecology & Evolution