В ходе адаптации к теплу или холоду ферменты находят одни и те же решения типовых эволюционных задач
Американские химики и биологи провели беспрецедентное по масштабу исследование закономерностей эволюции белков на примере адаптации ферментов к высоким и низким температурам. Адаптация к холоду, как правило, требует повышения каталитической активности фермента, а при высокой температуре на первый план выходит проблема стабильности его трехмерной структуры. Как выяснилось, баланс между активностью и стабильностью может определяться одним-единственным аминокислотным остатком в активном центре фермента. Например, если у фермента кетостероид-изомеразы в ключевой позиции №103 стоит аспарагиновая кислота (D103), фермент высокоактивен, но не очень стабилен, а если там находится серин (S103), то все наоборот. Самое интересное, что эти эффекты мало зависят от того, какие аминокислоты стоят во всех остальных позициях (это называют «слабым эпистазом»). В результате получается стандартный и легко проходимый эволюционный путь, доступный организмам с самыми разными версиями кетостероид-изомеразы. И действительно, в ходе адаптации к холоду в разных эволюционных ветвях бактерий много раз независимо закреплялся вариант D103, а в ходе адаптации к теплу — S103. Анализ 2194 типов ферментов (белковых семейств) у 5852 видов бактерий с известными геномами и температурными оптимумами показал, что эти особенности температурной адаптации — важность единичных замен, слабый эпистаз и вездесущие параллелизмы — характерны для многих ферментов.
Земная жизнь в ходе эволюции освоила широкий диапазон температурных условий. Одни организмы сохраняют активность при охлаждении до −15°C, другие выдерживают нагревание до +121°C. Важнейшую роль в температурной адаптации играет эволюционная «настройка» ферментов. Разные температурные условия предъявляют к ним очень разные требования. Высокие температуры грозят денатурацией, а значит, должны способствовать отбору на стабильность пространственной структуры ферментов. При низких температурах химические реакции, необходимые для жизни, замедляются. Поэтому адаптация к холоду, по идее, должна сопровождаться отбором на повышенную каталитическую активность ферментов. Действительно, при умеренных температурах порядка 20–40°C ферменты холодолюбивых микробов часто оказываются более активными, чем соответствующие (ортологичные) ферменты теплолюбивых микроорганизмов. Известно также, что температура, при которой ферменты данного микроба наиболее активны, довольно строго коррелирует с температурой, при которой микроб быстрее всего размножается.
Адаптация к различным температурным условиям — процесс, можно сказать, вездесущий, ведь всем живым существам приходится так или иначе приспосабливаться к определенному диапазону температур. Поэтому на примере температурной адаптации удобно изучать общие закономерности эволюции ферментов. Именно это и попытались сделать биологи и химики из Стэнфордского университета и Калифорнийского университета в Сан-Франциско, чья впечатляющая как по объему, так и по содержанию статья появилась 5 марта на сайте журнала Science. Ученые сосредоточились на ферментах бактерий, поскольку именно по бактериям накопилось больше всего необходимых для такого исследования данных: геномных, биохимических и экологических.
Для начала авторы досконально разобрались в механизмах температурной адаптации одного хорошо изученного фермента — кетостероид-изомеразы (ketosteroid isomerase, KSI). Затем они показали, что полученные выводы отчасти приложимы к тысячам других ферментов.
Фермент KSI катализирует изомеризацию двойных связей в молекулах стероидов. Это позволяет многим бактериям использовать стероиды в пищу. Ключевую роль в работе KSI играет так называемая оксианионная дырка (Oxyanion hole), расположенная в активном центре фермента и включающая два аминокислотных остатка (рис. 2, вверху). Обычно это остатки аспарагиновой кислоты в позиции 103 (обозначается как Asp103 или D103) и тирозина в позиции 16 (Tyr16 или Y16). Их задача — образовать водородные связи с одним из атомов кислорода в молекуле субстрата (то есть стероида, который нужно подвергнуть изомеризации).
Ученые сравнили хорошо изученную мезофильную (адаптированную к умеренным температурам порядка 30°C) версию KSI бактерии Pseudomonas putida (mesoKSI) с термофильным вариантом того же фермента (thermoKSI) из бактерии Mycobacterium hassiacum, которая хорошо растет при 65°C. Как и следовало ожидать, thermoKSI оказался более стабильным (устойчивым к нагреванию), а mesoKSI — более активным при умеренных температурах.
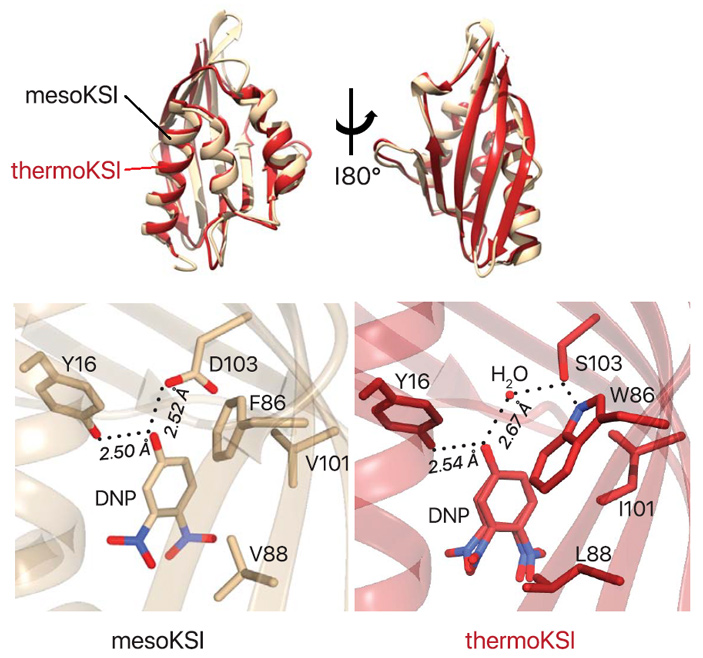
Аминокислотные последовательности mesoKSI и thermoKSI совпадают лишь на 33% (рис. 2, внизу), то есть это эволюционно довольно далекие друг от друга белки. Однако их трехмерные структуры, изученные авторами с большой тщательностью (в том числе при помощи рентгеноструктурного анализа), оказались почти одинаковыми (рис. 1, вверху). Это говорит о том, что большинство закрепившихся в ходе эволюции аминокислотных различий, скорее всего, не сильно повлияли на рабочие качества фермента.
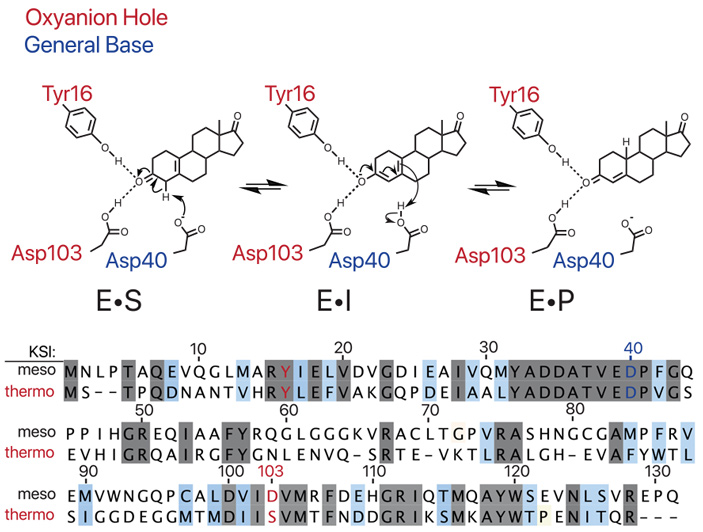
Рис. 2. Вверху: схема реакции, катализируемой ферментом KSI. Суть в том, что нужно слегка перекроить молекулу субстрата — стероида (конструкция из трех шестиугольников и пятиугольника). Для этого аминокислотные остатки Tyr16 и Asp103, входящие в состав активного центра фермента, должны образовать водородные связи (показаны пунктиром) с одним из атомов кислорода молекулы субстрата. Внизу: сравнение аминокислотных последовательностей мезофильной (meso) и термофильной (thermo) версий KSI. Ключевое различие — в позиции 103, где у mesoKSI стоит аспарагиновая кислота (D), а у thermoKSI — серин (S). Рисунок из обсуждаемой статьи в Science
Ключевое различие обнаружилось в строении активного центра (рис. 1, внизу). В позиции 103 у thermoKSI вместо аспарагиновой кислоты стоит серин (замена D103S). Изучение множества мутантных ферментов, в которых исследователи заменяли аминокислоты по одной или сразу по несколько, показало, что именно замена D103S вносит основной вклад как в повышенную стабильность, так и в пониженную активность thermoKSI по сравнению с mesoKSI. Небольшое влияние оказывают еще три аминокислоты, тоже находящиеся в активном центре и различающиеся у thermoKSI и mesoKSI (позиции 86, 88 и 101), но их роль второстепенна. Весь остальной аминокислотный «контекст», столь сильно различающийся у двух версий фермента (напомним, что у них совпадает лишь 33% аминокислот), практически не сказывается на том, как аминокислота в позиции 103 влияет на стабильность и активность. Поэтому если в белке mesoKSI просто заменить аспарагиновую кислоту на серин в позиции 103, ничего больше не меняя, то сразу получится фермент, похожий по своим свойствам на thermoKSI. И наоборот, если у thermoKSI провести обратную замену (S103D), то сразу получится фермент, похожий на mesoKSI по стабильности и активности. Если вдобавок к этой «главной» позиции поменять аминокислоты также и в трех «дополнительных» (86, 88, 101), сходство получится практически полным.
Это значит, что эпистаз (то есть влияние одних замен на эффекты других) не играет большой роли в температурной адаптации фермента KSI. Вопрос о роли эпистаза важен для понимания общих принципов эволюции белков, о чем «Элементы» неоднократно рассказывали (см. ссылки в конце новости). Сильный эпистаз означает, что эволюционные изменения, возможные в одном геномном контексте, будут нереализуемы в других. Слабый эпистаз соответствует более свободному перемещению белка в пространстве последовательностей (см.: Эволюция белков сдерживается низкой проходимостью ландшафта приспособленности, «Элементы», 09.02.2015). Результаты, изложенные в обсуждаемой статье, можно интерпретировать как аргумент в пользу не очень большой роли эпистаза — если не в эволюции белков в целом, то, по крайней мере, в температурной адаптации ферментов.
Исследование показало, что между версиями фермента KSI, настроенными на умеренные и высокие температуры, существует простой и легко проходимый эволюционный маршрут. Им неоднократно пользовались самые разные группы бактерий. Это оказалось возможным как раз благодаря слабому эпистазу, то есть тому факту, что конкретная аминокислотная замена приводит к одному и тому же результату вне зависимости от контекста. К этому выводу авторы пришли, проанализировав данные по тысячам видов бактерий. Оптимальные для этих видов температуры сопоставлялись с аминокислотными последовательностями KSI и с положением этих видов на эволюционном дереве. Выяснилось, что адаптация мезофильных бактерий к более высоким температурам часто сопровождалась заменой D103S. И наоборот, когда термофилы вдруг решали переселиться в места попрохладнее, с большой вероятностью происходила замена S103D. Три «дополнительные» позиции (86, 88 и 101) тоже обычно подтягивались к состоянию, оптимальному для данных температурных условий. Всё это происходило много раз независимо в разных эволюционных линиях.
Авторам удалось даже в общих чертах разобраться, почему замена аспарагиновой кислоты на серин в позиции 103 снижает активность, но повышает стабильность фермента. Для высокой активности нужно, чтобы аминокислотный остаток образовывал сильную водородную связь с субстратом. Это у аспарагиновой кислоты получается лучше, чем у серина (рис. 1, внизу). Стабильность же требует, чтобы аминокислотный остаток был в протонированном состоянии, то есть заканчивался группой -OH, а не -O−. У аспарагиновой кислоты с этим проблемы (она же всё-таки кислота), а у серина — нет.
Таким образом, слабый эпистаз обеспечивает существование простого и универсального эволюционного маршрута между версиями KSI, приспособленными к разным температурам. Это, в свою очередь, приводит к многочисленным случаям параллельной эволюции.
Чтобы понять, насколько общей является эта закономерность, авторы проанализировали данные по 2194 семействам ферментов у 5852 видов бактерий, для которых известны геномы и оптимальные температуры. Для каждого фермента, каждой аминокислотной позиции в этом ферменте и каждой из 20 аминокислот, которые в принципе могут стоять в этой позиции, ученые искали связь с температурой. Иными словами, был проведен целенаправленный поиск позиций, в которых частота встречаемости тех или иных аминокислот достоверно зависит от температуры. Если слабый эпистаз, наличие стандартных эволюционных маршрутов и многочисленные параллелизмы — общие правила температурной адаптации ферментов, то следует ожидать, что таких «температурозависимых» позиций и аминокислот найдётся очень много.
Это ожидание подтвердилось. Как минимум одна температурозависимая позиция нашлась почти у половины ферментов (1005 из 2194). Судя по тому, как аминокислоты, стоящие в этих позициях, распределены по эволюционному дереву, параллелизмы в эволюции этих ферментов происходили сплошь и рядом.
Остальные 1189 ферментов, очевидно, не нашли универсальных (то есть не подвластных эпистазу) путей температурной адаптации. Они, наверное, делают это другими способами, не такими универсальными, а подходящими только для определенных аминокислотных контекстов. Но в данном исследовании речь не о них.
В общей сложности исследователи нашли более 158 тысяч статистически значимых ассоциаций между температурой и определенной аминокислотой в определенной позиции определенного фермента. Один из примеров показан на рис. 3.

Рис. 3. Пример стандартного эволюционного маршрута температурной адаптации: позиция 452 фермента фосфат-ацетилтрансферазы (PAT). Фермент функционирует в виде гомодимера, то есть комплекса из двух одинаковых белковых молекул. Его структура показана слева. Аминокислота в позиции 452 участвует в соединении половинок. Графики показывают, что по мере увеличения оптимальной температуры роста (TGrowth) снижается вероятность того, что в данной позиции обнаружится треонин (T) или аспарагин (N), и растет вероятность того, что там будет стоять изолейцин (I). Эволюционное дерево (справа) показывает, что разные аминокислоты в позиции 452 (цветные точки на концах ветвей) распределены по дереву хоть и не совсем хаотично, но и без строгой приуроченности определенных аминокислот к определенным ветвям. Это значит, что в эволюции данного фермента было много параллелизмов. Изображение из обсуждаемой статьи в Science
В итоге получился внушительный массив данных по стандартным (высоковероятным) путям температурной адаптации ферментов. В этом массиве еще долго можно будет искать всякие интересные закономерности. Некоторые из них уже найдены авторами и описаны в обсуждаемой статье. Вот один пример. Ранее уже высказывалась идея, что эволюция термоустойчивости белков может сопровождаться ростом частоты встречаемости аминокислотных остатков с разветвленными цепями (изолейцина, лейцина и валина) в гидрофобной сердцевине белковой молекулы. Разветвленные цепи скрепляют ее наподобие клея. Новые данные показали, что частота встречаемости изолейцина действительно растет с увеличением температуры, но для лейцина и валина такой закономерности обнаружить не удалось. Видимо, это значит, что изолейцин является более универсальным (контекстно-независимым) клеем, чем лейцин и валин. Более того, оказалось, что две самые частые аминокислотные замены, происходящие при адаптации ферментов к высокой температуре — это замены лейцина и валина на изолейцин. Авторы предполагают, что изолейцин склеивает белковую молекулу лучше, чем валин, так как у него длиннее гидрофобная боковая цепь, и лучше, чем лейцин, потому что эта цепь у него асимметрична, может по-разному поворачиваться и легче встраивается в разнообразные пустоты во внутренней части белковой молекулы.
Обнаруженные авторами стандартные пути температурной адаптации ферментов иногда представляют собой единичные аминокислотные замены, но во многих случаях речь идет о согласованной замене двух или более аминокислот. Такое должно чаще происходить с аминокислотами, которые как-то взаимодействуют друг с другом, а значит, в трехмерной белковой молекуле они должны находиться по соседству (примерно как позиции 103, 86 и 101 у фермента KSI, см. рис. 1). Целенаправленный поиск таких контактирующих и при этом согласованно меняющихся групп аминокислот позволил обнаружить их более чем у половины (525 из 1005) ферментов, имеющих хотя бы одну температурозависимую позицию. В большинстве случаев это пары, но встречаются и тройки, и более многочисленные группы взаимодействующих аминокислот, имеющих обыкновение согласованно меняться в ходе температурной адаптации.
Обсуждаемая работа имеет как теоретическое, так и практическое значение. Составленная авторами база данных по аминокислотным заменам, ассоциированным с температурной адаптацией, будет полезна при проектировании искусственных белков с заданными свойствами. С теоретической точки зрения важен вывод о том, что температурная адаптация часто (хоть и далеко не всегда) идет по стандартным, высоковероятным эволюционным маршрутам, универсальность которых обеспечивается слабым эпистазом. Это ведет к бесчисленным параллелизмам: самые разные версии фермента, даже сильно отличающиеся друг от друга по аминокислотной последовательности, раз за разом находят одно и то же простое решение типовой эволюционной задачи.
Источник: Margaux M. Pinney, Daniel A. Mokhtari, Eyal Akiva, Filip Yabukarski, David M. Sanchez, Ruibin Liang, Tzanko Doukov, Todd J. Martinez, Patricia C. Babbitt, Daniel Herschlag. Parallel molecular mechanisms for enzyme temperature adaptation // Science. 2021. DOI: 10.1126/science.aay2784.
См. также о роли эпистаза в эволюции белков:
1) «Альтернативная история» белков проливает свет на роль случайности в эволюции, «Элементы», 18.09.2017.
2) Эволюция белков сдерживается низкой проходимостью ландшафта приспособленности, «Элементы», 09.02.2015.
3) Предсказуемый рост приспособленности достигается непредсказуемыми путями, «Элементы», 30.06.2014.
4) Параллельная эволюция изучена в эксперименте на бактериях, «Элементы», 01.02.2012.
5) В долгосрочном эволюционном эксперименте выявлен отбор на «эволюционную перспективность», «Элементы», 25.03.2011.
6) Расширение белковой вселенной продолжается, «Элементы», 24.05.2010.
7) Пути эволюции предопределены на молекулярном уровне, «Элементы», 12.04.2006.
-
почему замена аспарагиновой кислоты на серин в позиции 103 снижает активность, но повышает стабильность фермента
Я так и не понял, как ОДНА аминокислота определяет стабильность ВСЕЙ аминокислотной последовательности (в 250-350 а/к)... :[


-
Мне Ваши мысли понятны.
Согласно пирамиды структурной сложности увеличение сложности связано с использованием в структурах межмолекулярных взаимодействий с минимальной энергий. Слабые связи обеспечивают максимальную структурную сложность объектов. Для этого необходимо снижать температуру, чтобы эти связи не разрушались. Тем не менее, самые сложные структуры наблюдаются у человека при температуре 36,6 +-0.5 град.С.
Возможно эта температура представляет собой какой-то локальный минимум, при этом минимум окружен относительно крутыми стенками, поскольку диапазон допустимых температур достаточно узок.
Что это за температура 36,6 +-0,5 гр., которая может позиционироваться как некая фундаментальная постоянная? С чем связан такой узкий диапазон температуры, необходимый для нормального функционирования сложных структур у человека?
Здесь следует отметить, что на холодных планетах вполне возможна жизнь на основе азота. И по теории, эта жизнь может быть более сложной чем наша. Хотя оптимум, скорее всего связан с углеродом. Отсюда вопрос - что это за химический элемент - углерод, который создает максимальную структурную сложность?
Вполне возможно, что "беспрецедентное по масштабу исследование закономерностей эволюции белков" является попыткой издалека приблизится к нахождению ответов на указанные вопросы. -
Проблема в том что эволюционные процессы сложно излагать обычными человеческими языками без нагромождений лишних слов. Под "нахождением" и "решениям задач" в контексте подобных тем не стоит того смысла который используется по отношению к существам. Просто человеческие языки не имеют подходящих слов без "коннотаций воли".
И здесь в статье вполне очевидно что "ферменты находят одни и те же типовые решения" означают что "фермент оптимальный при одних температурах начинает разрушаться при других и в ходе случайных мутаций подбирается более стабильный фермент, тот фермент что окажется лучше в итоге вытесняет из популяции старый вариант фермента, и вот этот стабильный фермент как оказалось всегда один и тот же (типовой), что означает что другие варианты не такие эффективные и не закрепляются в популяциях". По смыслу одно и то же, а по количеству слов и удобоваримости текста гораздо хуже.
Как пример в экселе есть автоматическая функция "поиск решения", но никто же не думает что эксель при обычном подборе параметров использует волю или интеллект, это просто удобное, короткое название.
А смысл статьи в том что у эволюции есть некий коридор возможностей, а не бесконечно ветвящееся дерево решений. И несмотря на то что всё основано на случайных мутациях, зная закономерности в некоторой степени можно предсказать ход эволюции (несмотря на то что у эволюции нету воли или цели).-
Здесь скорее всего не так. Тот фермент который стабилен при высокой температуре хуже выполняет функцию фермента, чем фермент который не стабилен при высокой температуре. С другой стороны фермент который нестабилен при высокой температуре лучше работает при низкой температуре, чем абсолютно стабильный фермент. Нестабильный фермент более сложный, что ведет к улучшению реализации его функции.
При этом понижение температуры приводит к снижению эффективности обеих ферментов за счет естественного понижения скорости химической реакции и фазовых переходов (замерзания воды), которая осуществляется по действием фермента. Поэтому бесконечно увеличивать сложность нестабильного фермента для повышения его эффективности за счет снижения температуры нельзя.-
Ну я несколько о другом аспекте статьи писал...
Но вы всё же не вполне правы. Сложность структуры здесь особо не причём. Для ферментов важна форма, заряд и тому подобные вещи, главное что бы активный центр молекулы точно и прицельно садился на цель. Если вы посмотрите картинку 1 то на ней хорошо видно что форма (и соответственно сложность) у них практически идентичная. Дело просто в том что первый фермент (более "холодолюбивый") просто активнее второй формы, но при высоких температурах легче разрушается, потому более теплолюбивые организмы "отказываются" от первого (более эффективного, но не стабильного) в пользу второго (менее эффективного, но более стабильного). Причём различие двух версий фермента минимальны и заключаются в одной-двух заменах аминокислотных последовательностей.-
Причём различие двух версий фермента минимальны и заключаются в одной-двух заменах аминокислотных последовательностей.
Nein.
В заметке указано про их "никчёмную" идентичность (33%). Т.е. две-трети их аминокислот РАЗЛИЧАЮТСЯ кардинальным образом.-
Это лишь доказывает то что я и писал: важна форма белка, полярность или заряд, вобщем то что позволяет активному центру прицельно садиться на рабочую точку. Форма, как и полярность, как и активный центр обусловлены не очень большим набором аминокислот на нужных местах, а сам активный центр всегда очень мал по сравнению с остальной частью, всё остальное можно "забить" тем что просто не мешает этим целям. Да последовательности отличаются сильно, но форма практически идентичная. Собственно если вы внимательно прочтёте мой комментарий выше вы увидите что я и писал про форму. Опять таки прошу обратить внимание на первый рисунок, там два разных фермента наложены друг на друга, если бы их развели можно было бы написать классическое "найдите 10 отличий"
А вообще это хороший пример для тех кто утверждает что такая сложность не может возникнуть случайно. На самом деле в большинстве белков (особенно в громадных) можно смело позаменять значительную часть аминокислот чуть ли не на случайные и белок останется пригодным для работы. Чем и пользуются биологи, например встраивая флуоресцентные метки для отслеживания работы белков.-
"Опять таки прошу обратить внимание на первый рисунок, там два разных фермента наложены друг на друга, если бы их развели можно было бы написать классическое "найдите 10 отличий"
Там различается самое главное - конструкция активного центра (рис. 1). У mesoRSI конструкция представлена в виде треугольника, вершины которого составляют активные окончания. При этом вершины треугольника хорошо сбалансированы. Об этом, в частности, говорит то, что указанные расстояния между активными окончаниями элементов одинаковые. По видимому это важно для более эффективной работы фермента. А у termoKSI конструкция, с точки зрения электромагнитных полей, полностью разбалансирована. Об в этом говорит то, что элемент DNP выполнен в виде сдвоенного шестиугольника. А элемента, который обозначен как D103, вообще нет на положенном месте.
Возможно активный центр mesoRSI выполнен с использованием слабых связей, поскольку этот центр при высокой температуре разрушается. При этом слабые связи позволяют реализовать более сбалансированные структуры, в связи с тем, что они способны генерировать существенно большее разнообразие различных конструкций, в сравнении с конструкциями, которые характеризуется только относительно сильными связями.
-
-
-
-
В посте от 10.03.2021 07:44 при пояснении закономерности, которая отражена в виде пирамиды структурной сложности, упустил некоторые детали. Поясню более подробно.
Наверху пирамиды расположены элементарные частицы с простыми с виду внешними свойствами. Разнообразие частиц, скорее всего, конечно и возможно все частицы нашего мира уже открыты. Количество частиц, из которых состоит видимый окружающий нас мир, совсем небольшое. Внизу в основании пирамиды практически бесконечное разнообразие физических и биологических систем невероятной сложности. Если спускаться с вершины пирамиды вниз, то увеличиваться сложность объектов, увеличивается их разнообразие и уменьшается диапазон температуры, при котором могут существовать объекты. Разнообразие объектов на каждом уровне (слое) пирамиды отображается в виде площади уровня (слоя).
Так вот, с уменьшением температуры, наряду с увеличением сложности увеличивается разнообразие объектов. Если имеется большое разнообразие, то есть из чего выбрать и варианты выбранные в ходе естественного отбора белков будут лучше адаптированы к условиям окружающей среды и к качеству выполняемых функций. В принципе, различия версий белков могут быть небольшие. Но должно быть много вариантов таких различий.
Действительно, если взглянуть на рис.3, (справа), где показано распределение по разнообразию и по температуре в виде кольца, синих вариантов заметно больше чем красных. Даже на основе показанного распределения по температуре и по разнообразию можно построить немного усеченную сверху пирамиду структурной сложности, ориентированную на эволюцию белков.
-
-
Последние новости



Рис. 1. Трехмерные структуры двух версий фермента KSI (кетостероид-изомеразы). Версия, приспособленная к умеренным температурам (mesoKSI), показана светло-бежевым цветом, теплоустойчивая (thermoKSI) — красным. Структуры почти одинаковы несмотря на сильно различающиеся аминокислотные последовательности. Внизу — строение активного центра фермента. DNP — молекула субстрата, с которым аминокислотные остатки под номерами 16 и 103 должны образовать водородные связи (показаны пунктиром). У аспарагиновой кислоты (D103) это получается лучше, чем у серина (S103). Этим объясняется повышенная каталитическая активность mesoKSI по сравнению с thermoKSI. Зато от остатка аспарагиновой кислоты слишком легко отделяется протон, что снижает стабильность mesoKSI. Рисунок из обсуждаемой статьи в Science