Половой диморфизм у дрожжей обусловлен различиями в поведении половых клеток, а не в их морфологии
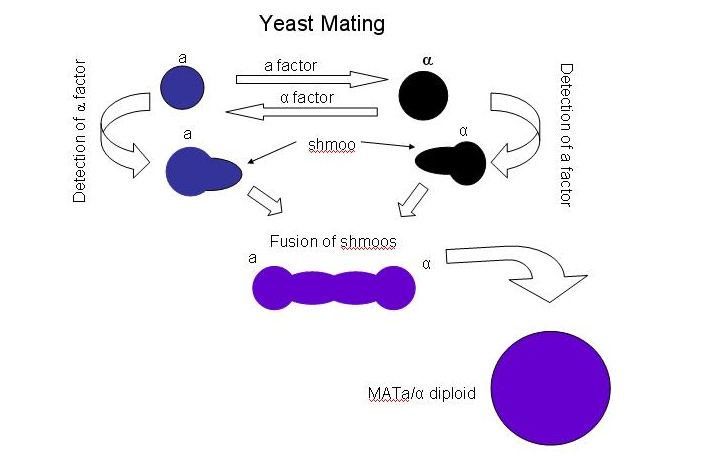
Группа микробиологов, разбираясь с деталями полового процесса дрожжей, выявила у них черты полового диморфизма. Клетки одного полового типа реагировали только на общее количество половых партнеров и формировали округлые клеточные кластеры при подготовке к конъюгации. Клетки второго полового типа реагировали как на общее количество клеток другого пола, так и на соотношение полов (число партнеров относительно собственной численности), а их клеточные кластеры приобретали удлиненную форму. В основе этой разницы, как выяснилось, лежат небольшие биохимические отличия феромонов «а» и «α», выделяемых клетками разных типов: молекулы феромона «а» гидрофобны и малоподвижны, а феромона «α» гидрофильны и высокоподвижны. Эта скромная биохимическая разница обеспечивает, тем не менее, различия в поведении, в форме клеточного деления половых клеток и, в конечном счете, высокую эффективность полового размножения в нестабильных условиях. Так что для формирования полового диморфизма дрожжам не потребовалось делать половые клетки разного размера и заставлять их конкурировать между собой. Они организовали половой диморфизм на основе разницы в биохимическом реагировании на феромоны, то есть на основе разницы в поведении, а не морфологии.
Группа Александра Андерса (Alexander Anders) из Института наземной микробиологии Макса Планка в Марбурге вместе c Альваро Бандерасом (Alvaro Banderas), работающим теперь в лаборатории физической химии в Парижском институте Кюри, много лет занималась изучением полового размножения у дрожжей. У дрожжей, как и у всех эукариотов, половой процесс имеется, хотя не является обязательной частью их жизненного цикла и не занимает в нем строгого места. Он может происходить между сестринскими спорами внутри тетрады спор, образовавшейся после мейоза диплоидной материнской клетки. Также он может происходить между гаплоидными клетками, произведенными разными материнскими диплоидами или гаплоидами. Материнские диплоиды и гаплоиды могут быть вегетативной стадией как одного клона дрожжей, так и разных. Иными словами, у дрожжей половой процесс проявляется во всех возможных видах: короткая гаплоидная стадия (гаметы) может «спариться» с длительной вегетативной, короткая диплоидная (зигота) — с длительной вегетативной (делящимися клетками и гаметами), а также — диплоидная и гаплоидная стадии, которые примерно равны по времени существования. При этом конъюгировать могут клетки одного материнского организма, так и разных. Такое разнообразие дает возможность прояснить природу некоторых загадочных явлений, связанных с половым процессом у эукариот. Один из них — это происхождение полового диморфизма, разницы в морфологии и поведении гамет двух полов.
Принято считать, что отправной точкой полового диморфизма является разница в размерах половых клеток (анизогамия). Эта разница позволяет более эффективно выполнять одну из двух задач: увеличить количество питательных веществ для выращивания следующего поколения, и активизировать поисковую активность для максимизации встреч двух клеток. Ясно, что эти задачи имеют разные морфологические и поведенческие решения. Первую задачу лучше выполнит крупная клетка с большим запасом питательных веществ, а со второй лучше справится мелкая подвижная клетка. А раз так, то запускается половой отбор во всех своих видах, заставляющий специализироваться два типа половых клеток согласно их функциям. Так как в каждом случае разницу обеспечивает свой набор генов, то вместе с половым диморфизмом неизбежно стартует конкуренция между полами, подстегивающая специализацию и удерживающая равное соотношение производителей половых клеток обоих сортов.
Данная схема логична и вполне устраивает ученых. Их больше занимают вопросы о механизмах и форме конкуренции половых клеток, чем проверка базовой природы анизогамии. В этом направлении двигалась и группа Андерса, изучавшая феромоны и рецепторы к ним в двух типах половых клеток дрожжей. Половые типы у дрожжей называются MATa и MATα (сокращение от mating type и названия разновидностей выделяемого клетками феромона, «a» и «α»). В частности, марбургская группа показала, что один из половых типов, MATa, выделяет особую пептидазу Bar1, которая режет феромон противоположного пола, не допуская спаривания. В результате, клетка вместо того, чтобы приступить к конъюгации, продолжает спокойно делиться вегетативно. Ученые увидели в этом проявление конкуренции между полами (A. Banderas et al., 2016. Sensory input attenuation allows predictive sexual response in yeast).
Продолжая это исследование, ученые намеревались отследить поведение половых клеток и экспрессию других белков, связанных с половыми феромонами MATa и MATα. Они хотели доказать, что все, кроме феромонов и упомянутой пептидазы, в половых типах экспрессируется одинаково. Но до изучения экспрессии ученые не дошли, так как наткнулись на другой неожиданный результат. Он оказался важнее и значительнее, чем исходная задумка.
По ходу работы ученые снимали форму и положение половых типов MATα и MATa друг относительно друга, порядок их деления, реакцию на присутствие полового партнера и частоту конъюгаций. Опыты ставились на твердом субстрате, а не в жидком, так что весь процесс был дотошно зарегистрирован. Клетки MATα и MATa экспрессировали специфичные флуоресцентные белки, так что легко различались под микроскопом: MATα были синими, а MATa — красными.
Наблюдения показали, что «синие» и «красные» клетки ведут себя по-разному и по-разному реагируют на изменение плотности популяции и соотношение «полов». Синие MATα закономерно увеличивают реакцию (запускают каскад процессов, связанных с подготовкой к конъюгации) при увеличении плотности популяции (рис. 2). Чем больше вокруг потенциальных партнеров, тем охотнее клетка готовится к встрече с ними. При этом число присутствующих партнеров (соотношение полов) никак не меняет эту реакцию, то есть форма данной зависимости от плотности популяции постоянная (вставка на рис. 3). Синие клеточные кластеры типа «α», которые образуются в результате вегетативного почкования в присутствии полового партнера, остаются более или менее круглыми.
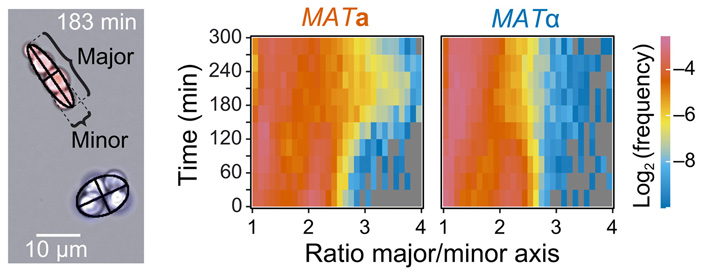
Рис. 2. Форма клеточных кластеров MATα и MATa, формирующихся в присутствии половых партнеров: кластеры красных клеток MATa с течением времени становятся удлиненными — сдвиг в относительном числе удлиненных кластеров на графике хорошо заметен. Кластеры синих клеток MATα со временем не становятся более удлиненными. Рисунок из обсуждаемой статьи в Science Advances
Красные клетки MATa тоже начинают настраиваться на половой процесс при повышении плотности популяции (рис. 3), но более хитрым образом. Их биохимическая реакция максимальна лишь при равном соотношении полов. А когда клеток противоположного пола относительно мало, то даже при высокой общей плотности популяции эта реакция существенно меньше. Клеточные кластеры в присутствии половых партнеров становятся удлиненными; такая форма кластеров получается при строго направленном (биполярном) отделении дочерних клеток.
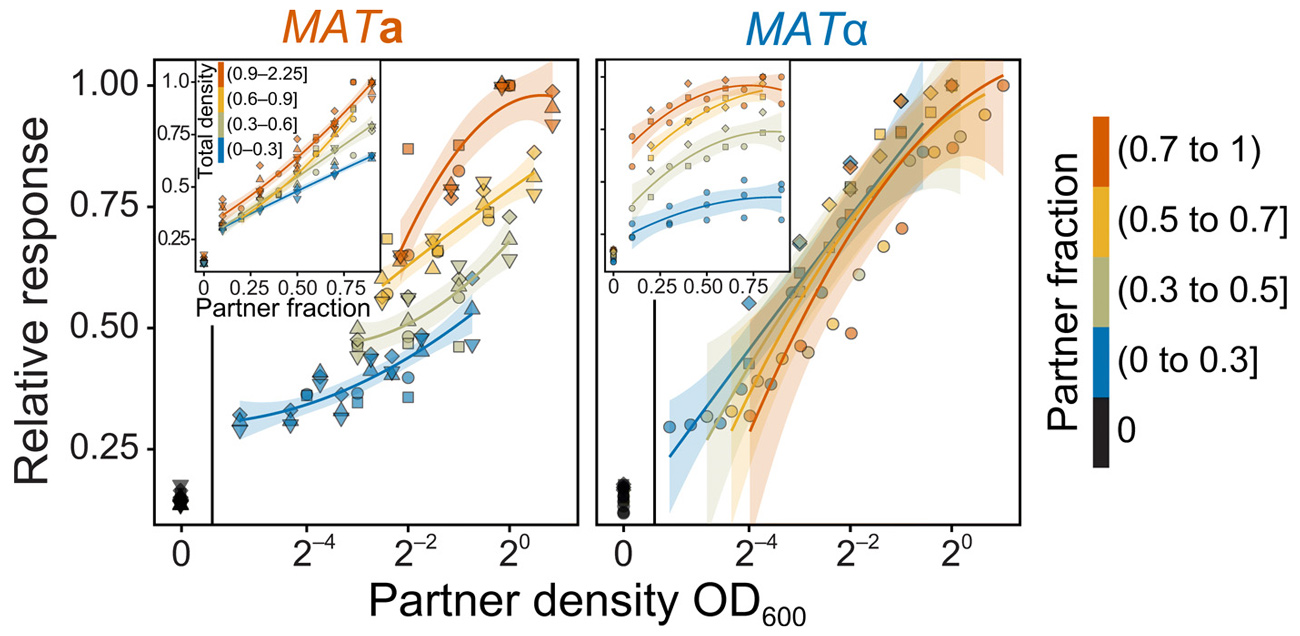
Рис. 3. Биохимическая реакция подготовки к конъюгации (по вертикальной оси) у клеток MATα и MATa в ответ на популяционное окружение. Основные графики — зависимость от численности партнера, разными цветами показаны соотношения полов. Во вставках те же данные, но в зависимости от соотношения полов, цветами обозначена общая плотность клеток. Рисунок из обсуждаемой статьи в Science Advances
Таким образом, клетки типов MATα и MATa демонстрируют разную биохимическую реакцию в присутствии половых партнеров и формируют разные по форме клеточные кластеры: у MATα реакция не специфическая и кластеры округлые, а у MATa реакция модулируется соотношением полов и клеточные кластеры становятся удлиненными. Эта разница, что самое любопытное, организуется биохимически очень просто — феромон «α» гидрофильный, а феромон «a» гидрофобный. Из-за этого они имеют разную скорость диффузии: у «α» она выше, чем у «a». Значит MATa, отвечающий на «α», должен отслеживать реальное число половых партнеров и их расположение, чтобы не тратить впустую ресурсы на бесполезную подготовку к конъюгации. Если клетка изготовится, но встречи не произойдет, она, скорее всего, откажется от дальнейших попыток полового размножения (см. новость Дрожжи помнят о неразделенной любви, «Элементы», 26.12.2013). У клеток MATα таких проблем нет, так как концентрация феромона напрямую определяется количеством половых партнеров и их удаленностью. Прежние представления ученых о задачах пептидазы Bar1 в связи с новыми данными поменялись: Bar1 — это не оружие одного из полов против другого, а, напротив, инструмент восстановления равновесия между двумя полами.
Почему на эту разницу стоит обратить внимание? Почему специалисты, увидев такой результат, отбросили свои текущие задачи и принялись разбираться в этом? Потому что в этих деталях кроется намек на зарождение полового диморфизма. Получается, что биохимический половой диморфизм (разница в реакциях клеток на присутствие полового партнера) и морфологический (форма кластеров) может формироваться и без размерной разницы, без анизогамии. Она для этого оказывается вовсе не обязательна. Но если разницы в размерах нет — а клетки MATa и MATα морфологически не различимы — то зачем в данном случае половой диморфизм вообще нужен? Были бы феромоны химически сходными — и не понадобились бы специальные инструменты для отслеживания числа потенциальных партнеров, лишним оказалась бы организация биполярного деления кластеров...
Ученые ответили на этот вопрос с помощью модели. Модель имитировала ситуацию без указанных различий и с ними в стабильных условиях с высокой численностью клеток и в нестабильных условиях с низкой численностью клеток. Округлые клеточные кластеры, рассылающие свои гидрофильные (и, следовательно, высокоподвижные) феромоны, могут быстро обозначить свое присутствие вблизи полового партнера. А удлиненные клеточные кластеры, выстроившись в линию, уменьшают расстояние до потенциального партнера и быстрее обеспечивают встречу к взаимной выгоде половых партнеров. В стабильных условиях при высокой численности популяций подобный половой диморфизм не дает никаких преимуществ. Но зато когда условия ухудшаются, и численность клеток снижается, такая разница увеличивает вероятность встреч половых партнеров и повышает шансы адаптироваться к новой ситуации. Без полового процесса адаптация маловероятна (см. новости Дрожжи занимаются сексом не от хорошей жизни, «Элементы», 18.04.2012 и Половое размножение помогает отбору отделять полезные мутации от вредных, «Элементы», 01.03.2016).
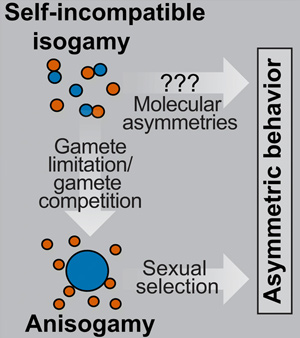
Рис. 4. Схематичное представление возможных путей появления полового диморфизма. Рисунок из обсуждаемой статьи в Science Advances
Из этих данных следует два вывода. Во-первых, половой диморфизм мог формироваться изначально как разница в поведении, а не в размерах. Во-вторых, половой диморфизм — это не обязательно результат конкуренции половых клеток с разными задачами, но, возможно, взаимный договор о разделении функций, увеличивающий количество общего потомства. Такой половой диморфизм может обеспечить выживание группы при наступлении стрессовых условий. В таких условиях повышенный шанс оставить потомство оказывается у тех, кто снаряжен инструментом для сотрудничества. Так что половой диморфизм оказывается чрезвычайно полезен для популяции — он или увеличивает эффективность воспроизводства в стабильных условиях в силу специализации запасающих и подвижных клеток, или увеличивает эффективность встреч партнеров в нестабильных условиях. Отбор будет поддерживать и то, и другое направление. И какое из них важнее, какое возникло раньше — сказать нельзя. Два возможных пути возникновения полового диморфизма ученые отразили на простой схеме (рис. 4), скромно поставив вопросы на своей гипотезе — на стрелке, ведущей напрямую от изогамии к поведенческому половому диморфизму, минуя стадию анизогамии. Они справедливо считают, что новый механизм возникновения полового диморфизма хорошо бы проверить на других примерах.
Источник: Alexander Anders, Remy Colin, Alvaro Banderas and Victor Sourjik. Asymmetric mating behavior of isogamous budding yeast // Science Advances. 2021. DOI: 10.1126/sciadv.abf8404.
Елена Наймарк


Последние новости



Рис. 1. Схема полового размножения дрожжей. Клетки двух половых типов MATa и MATα выделяют феромоны «а» и «α». Их половые партнеры, получив соответствующий сигнал от своих рецепторов, начинают делиться и отращивают копулятивные отростки по направлению к источнику сигнала. Затем происходит конъюгация с образованием диплоидной клетки (MATa/α). Эта обобщенная схема не учитывает наличия полового диморфизма у дрожжей, а он, как выяснилось в новом исследовании немецких микробиологов, добавляет к их половому процессу адаптивный смысл. Рисунок с сайта openwetware.org