Эволюция генетического разнообразия бактерий направляется внутривидовой конкуренцией и гонкой вооружений с фагами
Эволюционный эксперимент на бактериях и фагах позволил в деталях проследить, как совместное действие двух факторов — внутривидовой конкуренции и гонки вооружений с паразитами — направляет эволюцию внутривидового разнообразия у бактерий, защищающихся от фагов при помощи системы CRISPR. Исследование подтвердило классическую гипотезу «убей победителя», согласно которой паразиты поддерживают разнообразие способов защиты у жертв, преимущественно поражая особей с самым распространенным вариантом защиты. Однако, вопреки классическим представлениям, в выигрыше в итоге оказываются не более редкие варианты из исходно имеющегося набора, а новые, появляющиеся в ходе адаптации «победителей» к усиленному прессу паразитов. Родоначальниками новых успешных штаммов часто становятся именно прежние «победители», потому что они сильны в конкуренции с другими штаммами и имеют высокую численность, пока их не одолеют вирусы. В результате разнообразие бактерий постоянно обновляется. В целом бактерии опережают фагов в эволюционной гонке, потому что способны быстро вырабатывать сотни разных вариантов защиты от одного и того же фага (сотни разных спейсеров в локусе CRISPR), в то время как фагу нужны особые мутации для преодоления каждой из этих защит, и у него нет аналогов системы CRISPR для направленного редактирования своего генома. В результате даже высочайшая скорость эволюции вирусов оказывается недостаточной, чтобы поспеть за системой адаптивного иммунитета бактерий. Но фаги продолжают процветать, потому что в случае их локального вымирания конкуренция между штаммами бактерий приводит к быстрой утрате иммунного разнообразия, что делает бактерии уязвимыми для новых эпидемий.
Антагонистическая коэволюция (эволюционная гонка вооружений) между паразитами и хозяевами считается одним из важнейших факторов, способствующих сохранению и росту биоразнообразия. Это подтверждается, в частности, результатами эволюционных экспериментов на бактериях и фагах (см.: Гонка вооружений — двигатель эволюции, «Элементы», 01.03.2010). Основная идея в том, что в системе «паразит — хозяин» с большой вероятностью будет работать отрицательный частотно-зависимый отбор, который дает преимущество редким вариантам. Паразиты, совершенствуя свою способность заражать самый массовый вид (или разновидность) потенциальных жертв, тем самым обеспечивают преимущество редким видам (разновидностям). Но когда редкая разновидность начинает наращивать свою численность, она становится более лакомой добычей для паразитов. Иначе говоря, усиливается отбор на способность паразитов лучше справляться с защитными системами именно этой, в прошлом редкой, разновидности жертв, а паразиты, специализирующиеся на данной жертве, получают селективное преимущество. В зависимости от конкретной ситуации (или от параметров компьютерной модели) это может приводить к разным исходам — от бесконечных волнообразных колебаний численностей генотипов до безудержного роста разнообразия как паразитов, так и их жертв (см.: Разнообразие тропических насекомых поддерживается благодаря узкой специализации паразитов, «Элементы», 18.03.2014).
Помимо паразитов, на динамику относительной численности видов (или генотипов) жертв влияет их конкурентоспособность (в том числе в отсутствие паразитов), причем эти два фактора могут вступать друг с другом в сложные взаимодействия. Например, вид, численность которого выросла по причине его высокой конкурентоспособности, может подвергнуться особо яростным атакам паразитов, так что в итоге в выигрыше окажутся менее конкурентоспособные виды. Этот механизм (его называют «убей победителя», „kill-the-winner“), по-видимому, вносит важный вклад в сохранение видового разнообразия микробных сообществ, где фаги не позволяют самому многочисленному виду окончательно вытеснить всех остальных (см.: S. Maslov, K. Sneppen, 2017. Population cycles and species diversity in dynamic Kill-the-Winner model of microbial ecosystems).
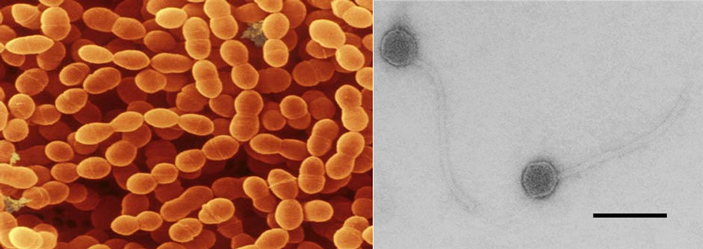
Значительно меньше известно о том, как работают подобные эволюционно-экологические механизмы на внутривидовом уровне, то есть, когда речь идет о конкуренции между генотипами или штаммами жертв, а не между разными видами. Чтобы разобраться в этом, микробиологи и биоинформатики из Франции, Дании и Канады провели эволюционный эксперимент на удобных для этой цели объектах — бактерии Streptococcus thermophilus и ее смертельном враге — фаге 2972 (рис. 1).
S. thermophilus, как и многие другие бактерии и археи, борется с фагами при помощи системы наследуемого приобретенного иммунитета — CRISPR. О системе CRISPR лет 20 назад еще никто не слышал, кроме горстки специалистов, а сегодня знает каждый школьник. О ее устройстве «Элементы» не раз рассказывали (см. ссылки в конце новости), поэтому ограничимся лишь кратким напоминанием. Бактерия, зараженная фагом, но сумевшая выжить, с некоторой вероятностью вставляет в специальное место в своем геноме (в локус CRISPR) маленький (в данном случае — длиной 30 пар оснований) кусочек генома фага — спейсер. Спейсер становится полноправной частью хозяйского генома и передается потомкам наравне с остальными генами (поэтому CRISPR-иммунитет — наследуемый). Со спейсера считывается РНК, которая служит «наводчиком» для специальных ферментов, таких как Cas9. Эти ферменты исправно уничтожают молекулы ДНК, в которых есть участок с такой же последовательностью, как у спейсера. В результате бактерии оказываются надежно защищены от данного фага.
Фаги могут преодолеть эту защиту, приобретя мутацию в том участке своего генома, последовательность которого совпадает со спейсером (это участок в вирусном геноме называется «протоспейсером»). Тогда комплекс из Cas9 и РНК, считанной со спейсера, перестанет узнавать ДНК данного вируса. Но это не решает всех проблем фага, потому что бактерии могут из одного и того же вирусного генома нарезать и вставить в свои локусы CRISPR сотни разных спейсеров. Поэтому иммунная защита от одного и того же фага в популяции бактерий может быть очень разнообразной: разные бактерии несут в своих локусах CRISPR разные спейсеры, и даже у одной бактерии может быть сразу несколько спейсеров против данного фага. Это сильно осложняет фагам жизнь, ведь для преодоления каждого защитного варианта вирусу нужна отдельная мутация (см.: Ученые выяснили, почему бактериофагам трудно бороться с иммунной системой бактерий, «Элементы», 18.04.2016).
Как в таких условиях будет коэволюционировать внутривидовое генетическое разнообразие бактерий и фагов? Чтобы в этом разобраться, ученые воспользовались полученными в ходе предыдущего исследования (H. Chabas et al., 2019. Variability in the durability of CRISPR-cas immunity) штаммами S. thermophilus с разными спейсерами против фага 2972 (по одному спейсеру у каждого из 16 штаммов бактерий) и фагами, выработавшими устойчивость к этим спейсерам (16 штаммов вирусов, каждый из которых устойчив к одному из спейсеров).
Схема эволюционного эксперимента показана на рис. 2.
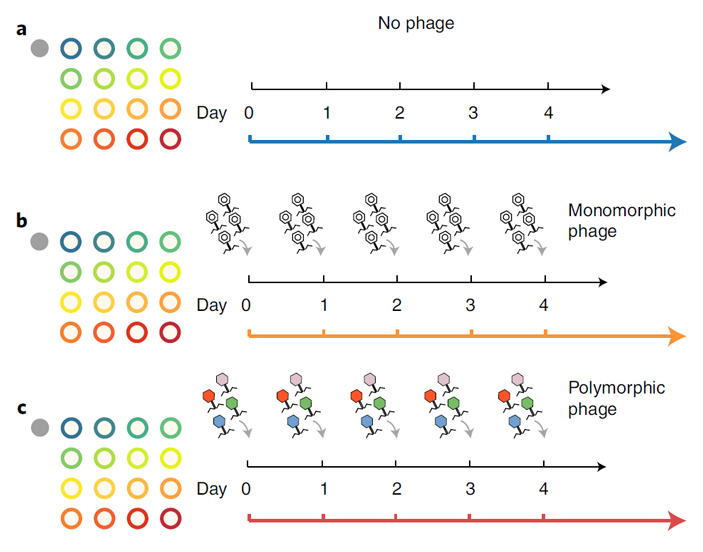
Рис. 2. Схема эволюционного эксперимента. Пояснения в тексте. Рисунок из обсуждаемой статьи в Nature Ecology & Evolution
Эксперимент продолжался четыре дня (вот оно, главное преимущество работы с быстро размножающимися объектами!) и проводился в трех вариантах (a, b и c на рис. 2), каждый вариант — в 7–8 повторностях. Во всех случаях использовалась одна и та же смесь из 17 штаммов бактерий: один штамм дикого типа, беззащитный перед фагом (серый кружочек на рис. 2) и 16 штаммов с «односпейсеровым» CRISPR-иммунитетом против фага, причем спейсеры у каждого штамма были разные (разноцветные кружочки). Раз в сутки 1% культуры переносили в свежую питательную среду.
В первом случае (а) бактерии эволюционировали без фагов. Во втором (b) при каждой пересадке добавляли 105 фагов дикого типа (Monomorphic phage), способных заражать только один из 17 штаммов бактерий (незащищенный). В третьем случае (c) использовалась смесь из 16 вариантов вирусов (Polymorphyc phage), каждый из которых благодаря тем или иным мутациям способен заражать один из защищенных штаммов бактерий (и, конечно, все 16 могут заражать незащищенный штамм). Новых фагов добавляли ежедневно, чтобы фаги не вымерли (бактерии, вооруженные системой CRISPR, часто доводят фагов до полного вымирания в лабораторных культурах), но это не помешало фагам эволюционировать в ходе эксперимента, как стало ясно из результатов.
В контроле без вирусов (вариант a) численность бактерий оставалась примерно постоянной на протяжении всего эксперимента. В варианте b (одинаковые вирусы) в первый день численность бактерий была почти такой же, как в контроле. Это ожидаемый результат, поскольку «дикие» вирусы могли заразить лишь каждую семнадцатую бактерию. Но на второй день разразилась эпидемия, резко сократившая численность бактерий. То есть вирусы научились преодолевать бактериальный CRISPR-иммунитет. В варианте c (разные вирусы) жестокая эпидемия разразилась уже в первый день. Однако к концу эксперимента (на четвертый день) в обоих вариантах с вирусами (b и c) бактерии справились с инфекцией, и их численность снова приблизилась к контрольной. Добились они этого, конечно же, благодаря новым спейсерам в локусах CRISPR.
Самые интересные результаты касаются динамики разнообразия бактерий в трех вариантах опыта (рис. 3). Авторы отслеживали эту динамику, секвенируя только один маленький фрагмент бактериального генома — локус CRISPR, так что речь на самом деле идет не о «разнообразии вообще», а о разнообразии спейсеров или «иммунном разнообразии».

Рис. 3. Динамика разнообразия бактерий в трех вариантах опыта (A, B, C). Показаны все повторности: семь для варианта А, по восемь для вариантов B и C. По горизонтальной оси — время (дни эксперимента), по вертикальной — численность бактерий. Разными светлыми цветами показаны исходные 16 защитных вариантов и семнадцатый, незащищенный штамм, не имеющий спейсеров против фага 2972 (серый). Более темными цветами показаны штаммы с добавившимися новыми спейсерами. Рисунок из обсуждаемой статьи в Nature Ecology & Evolution
В варианте а (без фагов) разнообразие защитных вариантов быстро снижалось и к концу эксперимента упало до минимума. Большинство доживших до конца опыта бактерий относились только к двум штаммам («красному» и «зеленому», см. рис. 3). Это объясняется тем, что 17 штаммов исходно различались по своей конкурентоспособности, поскольку в процессе выведения этих штаммов (напомним, что их отбирали на устойчивость к фагу 2972 в ходе предыдущего исследования) у них закрепились не только новые спейсеры в локусе CRISPR, но и другие мутации, влияющие на приспособленность. Самым приспособленным оказался красный штамм (у него восемь уникальных несинонимичных мутаций в белок-кодирующих генах), который уже с первого дня стал быстро вытеснять остальные штаммы во всех семи повторностях варианта а. Правда, на третий день произошло кое-что непредвиденное: вдруг начала расти численность зеленого штамма, который поначалу не показывал особых успехов (у него только две уникальные мутации в белок-кодирующих генах). Это произошло во всех семи повторностях, а значит, это нельзя объяснить случайным появлением полезной мутации у кого-то из представителей зеленого штамма. Возможно, дело тут в каких-то взаимодействиях между штаммами (может быть, зеленый штамм получает селективное преимущество в сообществе, где доминирует красный штамм). Впрочем, в контексте данного исследования это не так уж важно, главное, что во всех семи контрольных популяциях события развивались практически одинаково.
Присутствие вирусов в вариантах b и c резко изменило эволюционную судьбу бактериальных популяций. Во-первых, эта судьба стала менее предсказуемой, что хорошо видно на рис. 3: повторности в вариантах b и c гораздо сильнее отличаются друг от друга, чем повторности варианта а. Во-вторых, общее разнообразие защитных вариантов сокращалось медленнее, чем в варианте a, а главное, на третий день начали распространяться бактерии с новыми спейсерами, появившимися уже в ходе эксперимента (они показаны более темными цветами на рис. 3). В результате к концу эксперимента иммунное разнообразие микробных популяций оказалось выше, чем в варианте а.
Это согласуется с классической идеей о том, что паразиты помогают жертвам оставаться разнообразными, «убивая победителей» и не позволяя им полностью вытеснить конкурентов. Однако, в отличие от классической модели, в данном случае коэволюция с фагами привела не к сохранению исходных защитных вариантов, а к распространению новых. К концу эксперимента в большинстве популяций в вариантах b и c доминировали именно новые защитные варианты. В ряде случаев бактерии успели обзавестись даже не одним новым спейсером, а двумя или тремя (эти случаи на рис. 3 обозначены самыми темными цветами).
Пожалуй, самый интересный результат состоит в том, что новые успешные варианты, как правило, происходили от штаммов, оказавшихся «победителями» в варианте а: красного и зеленого. Самым простым (парсимоничным) объяснением этого авторы считают более высокую численность этих штаммов в первые 1–2 дня эксперимента: поскольку их было больше, новые защитные варианты с наибольшей вероятностью возникали именно у них. Альтернативным объяснением могут быть какие-то генетические особенности красного и зеленого штаммов, влияющие на эффективность создания новых спейсеров. Но это вряд ли: ни одна из уникальных мутаций у этих штаммов не затрагивает гены, о которых известно, что они влияют на приобретение спейсеров CRISPR.
Статистическая обработка полученных результатов показала, что в вариантах b и c работал отрицательный частотно-зависимый отбор. Это значит, что прирост относительной численности штамма на интервале времени от t до t+1 отрицательно коррелирует с его относительной численностью в момент t. То есть штаммы, более многочисленные сегодня, с большей вероятностью будут реже встречаться завтра, и наоборот: те, кто сегодня редок, имеют повышенные шансы завтра стать более многочисленными. В варианте а ничего подобного не наблюдается. Эти результаты согласуются с идеей о том, что самые многочисленные защитные варианты подвергаются усиленному прессу паразитов, и что паразиты, таким образом, не дают жертвам утратить иммунное разнообразие — как и предсказывает модель «убей победителя».
Секвенирование геномов фагов показало, что они тоже изо всех сил эволюционировали. Многочисленные точечные мутации, поддержанные отбором, в основном приурочены к протоспейсерам. Это значит, что лейтмотивом эволюции фагов была борьба с системой CRISPR.
Мутация в протоспейсере позволяет фагу преодолевать иммунную защиту, обеспечиваемую конкретным спейсером. Поэтому, зная, какие спейсеры и в каком количестве имелись в бактериальной популяции в каждый момент времени, и имея аналогичную информацию по генотипам фагов, можно оценить, насколько данная популяция фагов была приспособлена к данной популяции бактерий. Средняя приспособленность фагов к бактериям вычислялась по формуле:
\[\bar{w}=\sum\limits_{i=1}^n h_i p_i,\]где \(n\) — число генотипов жертв (бактерий), \(h_i\) — частота встречаемости данного генотипа бактерий, \(p_i\) — частота встречаемости тех вариантов фагов, которые способны заразить таких бактерий.
Оказалось, что фаги в каждый момент времени были лучше всего приспособлены к бактериям, жившим 1–2 дня назад. К бактериям, существующим одновременно с ними, фаги приспособлены чуть хуже, а к завтрашним бактериям — гораздо хуже. Столь низкая приспособленность сегодняшних фагов к завтрашним бактериям говорит о том, что бактерии вырабатывают CRISPR-иммунитет к фагам поразительно быстро.
По-видимому, в этой эволюционной гонке фаги в целом проигрывают бактериям. Об этом говорит и динамика численности тех и других: к концу эксперимента в вариантах b и c численность бактерий выросла, а фагов — снизилась. Неудивительно, что при совместном культивировании фагов с бактериями, обладающими системой CRISPR, дело нередко кончается полным вымиранием фагов. Эволюция на основе случайных мутаций, даже такая быстрая, как у вирусов, не может тягаться с системой «целенаправленного», адаптивного редактирования генома, а именно такой системой является CRISPR. Тем более, что система CRISPR может нарезать из одного вирусного генома сотни разных спейсеров, а вирусу для борьбы с каждым из них нужны разные мутации. К тому же ранее было показано, что такие мутации, как правило, вредны вирусам, то есть снижают их приспособленность в отсутствие соответствующего варианта защиты у жертв.
Авторы также показали, что главным фактором, направлявшим эволюцию фагов в эксперименте, было разнообразие и частота встречаемости защитных вариантов у бактерий (а не, к примеру, частота мутирования разных участков вирусного генома или побочные эффекты мутаций, позволяющих преодолеть бактериальную защиту). То есть чаще всего у фагов распространялись те мутации, которые позволяли преодолеть наиболее распространенные варианты иммунной защиты у бактерий. Например, в варианте b у фагов самое широкое распространение получили мутации в том протоспейсере, спейсер к которому изначально был у самого конкурентоспособного штамма бактерий (красный штамм на рис. 2).
В целом полученные результаты соответствуют теоретической модели, которую называют «моделью королевской династии» (royal family model) (рис. 4). Наиболее конкурентоспособный штамм жертв наращивает свою численность (становится «победителем»). В ответ на это у фагов распространяются мутации, позволяющие преодолеть имеющийся у победителя вариант иммунной защиты. Фаги, таким образом, пытаются «убить победителя». Однако прежде, чем они успеют это сделать, кто-нибудь из победителей с большой вероятностью приобретет новый спейсер (скопированный, скорее всего, из генома фага, уже умеющего пробивать защиту победителей). То есть появится новый защитный вариант, против которого у фагов пока нет оружия.
Поскольку победители многочисленнее, чем другие штаммы бактерий, новый защитный вариант, скорее всего, появится именно у них. Быстрому распространению этого варианта будет способствовать не только то, что он защищает от фагов, но и то, что его обладатели унаследуют от своих предков — прежних победителей — те особенности, которые обеспечили предкам конкурентное преимущество перед другими штаммами.
Таким образом, новые победители происходят от старых победителей. Получается нечто вроде «королевской династии» доминирующих штаммов бактерий. Что касается вирусов, то у них тоже можно ожидать появления «королевских династий», потому что у вирусов, адаптированных к прежнему победителю, больше шансов приобрести мутацию, позволяющую заражать нового победителя (и в силу большей численности этих вирусов, и в силу того, что у них уже есть мутации, защищающие от спейсеров старого победителя, которые, естественно, наследуются новым победителем).

Рис. 4. Коэволюция бактерий и фагов в соответствии с моделью «королевской династии». В ходе внутривидовой конкуренции начинает побеждать самый приспособленный штамм бактерий. Фаги адаптируются к «победителю». Потом среди жертв начинает распространяться новый защитный вариант, который часто (хотя и не всегда) оказывается потомком штамма, побеждавшего на предыдущем этапе (он принадлежит к «королевской династии»). Теперь фаги должны приспосабливаться к новому «победителю». С большой вероятностью успеха добьется кто-то из потомков тех фагов, которые были лучше приспособлены к прежнему «победителю», то есть у фагов тоже формируется «королевская династия». Рисунок из обсуждаемой статьи в Nature Ecology & Evolution
Конечно, в реальной жизни всё сложнее, чем в четырехдневном лабораторном эксперименте, однако этот исследование, скорее всего, высветило некоторые реальные закономерности коэволюции фагов и бактерий. В частности, результаты контрольного опыта (вариант a) наглядно показывают, почему в природе фаги никогда не вымрут, хотя в пробирке они часто вымирают, не выдержав гонки с бактериями, вооруженными системой CRISPR. Дело в том, что после локального вымирания фагов конкуренция между штаммами бактерий будет приводить к стремительному сокращению иммунного разнообразия. Для этого вовсе не нужно ждать, пока случайные мутации выведут из строя или совсем удалят из локуса CRISPR ставшие ненужными спейсеры. Самые конкурентоспособные штаммы быстро вытеснят все остальные, и в результате в популяции останутся только те защитные варианты, которые есть у этих «победителей». Это сделает популяцию относительно беззащитной перед фагами, которые в любой момент могут быть занесены извне. Будет новая эпидемия, новый рост иммунного разнообразия, новое локальное вымирание фагов, новый спад разнообразия — и так далее до бесконечности.
Источник: Martin Guillemet, Hélène Chabas, Antoine Nicot, François Gatchich, Enrique Ortega-Abboud, Cornelia Buus, Lotte Hindhede, Geneviève M. Rousseau, Thomas Bataillon, Sylvain Moineau and Sylvain Gandon. Competition and coevolution drive the evolution and the diversification of CRISPR immunity // Nature Ecology & Evolution. 2022.
См. также:
1) Ученые выяснили, почему бактериофагам трудно бороться с иммунной системой бактерий, «Элементы», 18.04.2016.
2) Подведены итоги первого десятилетия изучения CRISPR, «Элементы», 13.07.2017.
3) Систему CRISPR можно использовать для аккуратного встраивания генов в нужное место, «Элементы», 18.06.2019.
4) Разнообразие тропических насекомых поддерживается благодаря узкой специализации паразитов, «Элементы», 18.03.2014.
5) Гонка вооружений — двигатель эволюции, «Элементы», 01.03.2010.


@
Черт возьми, какая глубокая мысль. Хоть куда её приложи, и во всех долгих процессах новые победители - это дети старых победителей.
Страшно подумать, что история есть описание процесса внутривидовой конкуренции как битвы менталитетов...
-
про историю - так и есть. Может, "культур" будет точнее, чем "менталитетов", но да, это такая внутривидовая конкуренция у культурного вида животных.
В статье нет ответа на очевидный вопрос: куда из замкнутого объема опыта девались "останки" фагов в тех случаях, когда они "вымирали", не в силах "пробить" защиту бактерий?
Не слишком ли замусорена микробиология антропоморфными образами типа "убей победителя" и "королевская династия"?
фаг по отношению к бактерии "убийца", "хищник".Keyword: лизогения. Хотя паразитоидами фаги всё же называть было бы точнее: в отличие от вирусов эукариот, для фагов выхода из клетки без её лизиса вроде как не бывает...
куда из замкнутого объема опыта девались "останки" фагов в тех случаях, когда они "вымирали"Туда же куда и опустошенные капсиды и обломки лизированных клеток. Такого протеинового и нуклеопротеидного детрита и в исходной питательной среде, если она на натуральном бульоне, выше крыши.
Не слишком ли замусорена микробиология антропоморфными образами типа "убей победителя" и "королевская династия"?Нет.
Ошибок так много и они так часты, что изменчивость их практически ноздря в ноздрю идёт с иммунитетом бактерий!
То есть совершенно бездумные ошибки в дублировани генома фагов ппроисходят столь быстро и результативно,
что работа стройного, целеустремленного и логичного СРИСПРа опережает фагов на всего-то один-другой день! А на деле изменчивость фагов ещё больше - ведь там логики никакой, и, значит, не все мутации работают фагам на пользу, многие происходят во вред, а иные - ни то ни се...
Это очень ново для меня. Я отчего-то думал, что осмысленная, целенаправленная деятельность существенно более результативна, чем выполнение какой-то работы тяп-ляп, спустя рукава, с кучей брака!)
Ну, типа, если я буду, например, лепить пельмени кое как, а повар за соседним столом - умело и качественно, то в результате у меня пельмени получатся не особо-то и хуже, чем у него! )))
-
Действительно, "разумность" продуктов слепого и неразумного процесса дарвиновской эволюции поражает.
Культурная эволюция, кстати, из этой же серии.
Повар из вашего примера не сам придумал, как лепить пельмени - он стоит на плечах многих предшествующих поколений пельменщиков, оттачивавших свое мастерство методом проб и ошибок, заблуждаясь и отступая, копируя рецепты самых успешных поваров и т.д.-
"Повар не сам придумал, как лепить пельмени - он стоит на плечах многих предшествующих поколений пельменщиков, оттачивавших свое мастерство методом проб и ошибок, заблуждаясь и отступая, копируя рецепты самых успешных поваров и т.д."
"Действительно, "разумность" продуктов слепого и неразумного процесса дарвиновской эволюции поражает."
Полностью согласен с этими утверждениями с небольшим уточнением.
На мой взгляд здесь необходимо уточнить смысл термина "разумность". Возможно "разумность" это суть "опыт" предшествующих поколений, выраженный в виде ингредиентов (элементарных частиц, атомов и т.п.) , необходимых для образования продуктов, также в виде законов физики, для того чтобы ингредиенты могли соединится в продуктах необходимым образом. Наконец необходима энергия для того чтобы привести процесс самосборки в действие.
При этом методом проб и ошибок в нашей Вселенной идет самосборка продуктов на основе предшествующего опыта.
Если принять концепцию самосборки структур материи в нашей Вселенной, то Юрий Фёдоров также правильно думал : "Если я буду, например, лепить пельмени кое как, а повар за соседним столом - умело и качественно, то в результате у меня пельмени получатся не особо-то и хуже, чем у него!"
Это на самом деле так. Если взять ингредиенты и инструменты для изготовления пельменей - тесто, фарш, разделочную доску, скалку. Далее вести процесс в соответствии с поваренной книгой (в соответствии с законами физики), то у нас с большой степенью вероятности получатся именно пельмени, а не какая то абракадабра. И эти пельмени можно есть. Откуда взялись ингредиенты и поваренная книга наука об этом умалчивает. Поэтому будем считать, что ингредиенты и поваренная книга есть в холодильнике, при этом ингредиенты всегда там появляются (путем флуктуации) когда это необходимо. :)
-
Но для достижения чего то большего нужно иное нежели дарвиновская эволюция - конкурентное выживание наиболее приспособленного. Например, увеличение сложности путём объединение нескольких не родственных ветвей, с центральной роли архей, и накапливанием чужих генов. А потом и цианобактерий - хлоропластов.
А так же размер имеет значение. Высокая сложность и всеобщая продвинутость достигается при большем размере.
На первых порах это вряд ли даёт дарвиновское преимущество. Дарвин плохой пророк кроме как для бактерий.
Восприятие этой философской идеи может иметь большие последствия, например в политике, экономике.
-
"А так же размер имеет значение. Высокая сложность и всеобщая продвинутость достигается при большем размере."
Это не всегда так. Например динозавры были большими, однако особой сложностью по сравнению с млекопитающими не отличались. При этом динозавры проиграли более сложноустроенным и более слабым млекопитающим. Хотя, для одноклеточных и вирусов размер имеет значение.
А философская идея о связи структурной сложности с разнообразием и температурным диапазоном при котором могут существовать объекты здесь давно обсуждалась. Эта взаимосвязь может быть наглядно проиллюстрирована в виде пирамиды структурной сложности.
Эволюционные эксперименты
-
 02.08.2026Создана синтетическая клетка, способная питаться, расти, делиться и эволюционироватьАлександр Марков • Новости науки
-
 24.08.2023Бактерия с синтетическим минимальным геномом сохранила способность к адаптивной эволюцииАлександр Марков • Новости науки
-
 12.06.2023В эволюционном эксперименте дрожжи превратились в макроскопические многоклеточные организмыАлександр Марков • Новости науки
-
 15.08.2022Эволюция генетического разнообразия бактерий направляется внутривидовой конкуренцией и гонкой вооружений с фагамиАлександр Марков • Новости науки
-
 14.01.2022Замена небольшого участка генома на синонимичный заставляет бактерию иначе решать ту же эволюционную задачуТатьяна Романовская • Новости науки
-
 14.01.2021В ходе эволюционного эксперимента удалось получить генералистов при симпатрическом видообразованииЕлена Наймарк • Новости науки
-
 18.11.2019Новый метод генетического штрихкодирования позволяет детально следить за эволюцией дрожжейАлександр Марков • Новости науки
Последние новости


CRISPR-Cas
-
 29.07.2025«Генетические ножницы»: прорыв или нет?Ирина Якутенко • Библиотека • «Троицкий вариант» №11(430), 2025
-
 18.06.2019Систему CRISPR можно использовать для аккуратного встраивания генов в нужное местоАлександр Марков • Новости науки
-
 13.07.2017Подведены итоги первого десятилетия изучения CRISPRЕлена Наймарк • Новости науки
-
 30.06.2016CRISPR/Cas-системыВера Мухина • Картинки дня
-
 12.03.2013Прокариотическая система иммунитета поможет редактировать геномВера Башмакова • Новости науки
-
 06.04.2011Приобретенный иммунитет у бактерий может быть связан с механизмами РНК-интерференцииЕлена Наймарк • Новости науки



Рис. 1. Бактерия Streptococcus thermophilus и ее смертельный враг, бактериофаг 2972 — удобные модельные объекты для изучения антагонистической коэволюции вирусов и бактерий. Размер бактериальной клетки — 0,7–0,9 мкм, диаметр капсида вируса — около 0,05 мкм (длина масштабного отрезка на правом фото — 100 нм). Фото с сайта supplementsglobal.com и из статьи C. Levesque et al., 2005. Genomic Organization and Molecular Analysis of Virulent Bacteriophage 2972 Infecting an Exopolysaccharide-Producing Streptococcus thermophilus Strain