При формировании зависимостей усиливаются связи между нейронами орбитофронтальной коры и полосатого тела
До сих пор мало известно о том, как происходит формирование зависимостей на клеточном уровне. Нейробиологи из Женевского университета провели серию экспериментов с применением оптогенетической стимуляции нейронов мозга мышей. Животные могли сами стимулировать свой мозг — так у них формировалась зависимость, которую затем пытались снять, введя негативный стимул (удары током). Отслеживание происходящих при этом изменений в мозге показало, что при устойчивой аддикции усиливаются связи между нейронами орбитофронтальной коры и дорсальной части полосатого тела (стриатума). Интересно, что больше половины подопытных животных с трудом отказываются от самостимуляции клеток «центров удовольствия», даже если за такую стимуляцию их сильно бьют током — и от генетики устойчивость их влечений будто бы не зависит.
Нервная система нужна животным, чтобы должным образом реагировать на стимулы из внешнего мира: игнорировать то, что не очень опасно для выживания, и делать то, что повысит вероятность долгой безбедной жизни. Запомнить, что и как искать, как поступать, помогают эмоции. То, что вызывает отрицательные эмоции, в норме стараются не повторять, а то, что влечет за собой положительные эмоции, ищут или делают вновь и вновь.
Положительные эмоции млекопитающим обеспечивает комплекс структур мозга под названием «система вознаграждения» (или «система внутреннего подкрепления»). В нее входят, в частности, парабрахиальные (parabrachial nuclei) и прилежащие ядра (эти структуры парные, по одной в каждой половине мозга), вентральная область покрышки (ventral tegmental area, VTA), а также вентральный паллидум, орбитофронтальная и островковая (инсулярная) кора и ряд других регионов.
Большую роль в «системе вознаграждения» играет нейромедиатор дофамин. Он выделяется ее нейронами, когда с животным происходит что-то приятное. Ряд наркотиков по химической структуре сходны с дофамином и другими моноаминами и влияют на перемещения «настоящих» нейромедиаторов в организме. Как правило, они сильнее самого дофамина и порой прочнее связываются с рецепторами к нему, в результате чего «естественный» нейромедиатор практически перестает появляться. Формируется зависимость.
Избавиться от зависимости — как наркотической, так и других — в теории можно, если создать ассоциацию некогда приятного стимула с резко неприятным. Тяга к нему перестанет быть адаптивной и поэтому пропадет. Скажем, экспериментальных животных можно сначала приучить к самовведению кокаина или метамфетамина: мышь или крыса нажимает на педаль или рычаг, и устройство вводит ей в вену по заранее вставленной игле дозу наркотика (см., например, E. K. Kmiotek et al., 2012. Methods for Intravenous Self Administration in a Mouse Model). Когда грызун научится это делать и станет совершать инъекции с завидным постоянством, к решетчатому полу клетки можно подвести напряжение и бить животное током каждый раз, когда оно введет себе определенное вещество.
После нескольких ежедневных сеансов такого битья большинство перестает «колоться». Однако 20% подопытных продолжает вводить наркотик несмотря на то, что за этим каждый раз следует сильная боль. Подобные состояния мы дальше будем называть устойчивой зависимостью или устойчивой аддикцией. Хотя подобные зависимости далеко не редкость, об их нейронных коррелятах известно мало. Понятно, что в формировании устойчивой зависимости задействованы дофаминергические (образующие дофамин) нейроны «системы вознаграждения», но какие именно и как они работают, точно не известно.
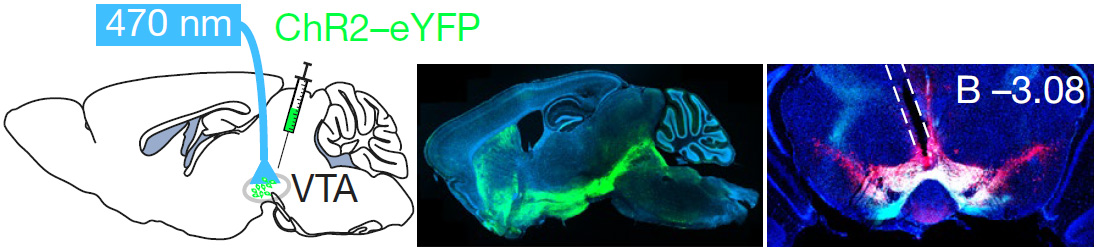
Исследователи из Женевского университета провели несколько серий экспериментов, и они позволили получить первые ответы на некоторые из указанных вопросов. Поскольку очень трудно сделать несколько абсолютно одинаковых по дозе инъекций наркотика, нейробиологи вместо них использовали оптогенетическую стимуляцию нейронов вентральной области покрышки (основы этого метода описаны, к примеру, в статье Оптогенетика. Как управлять нейроном с помощью света). Сначала в VTA ввели вирусные векторы, содержащие ген ченнелродопсина-2 (ChR2, см. Channelrhodopsin), соединенный с геном желтого флуоресцентного белка (YFP) (рис. 1). Флуоресцентный белок нужен для выявления клеток, «заражение» которых геном ченнелродопсина прошло успешно: такие нейроны светятся желтым, так как в них образуется YFP. Затем туда же подвели волокно для оптической стимуляции клеток, получивших способность активироваться в ответ на свет с длиной волны около 470–480 нм. Вентральную область покрышки в качестве мишени выбрали еще и потому, что больше половины нейронов в ней выделяют дофамин (см.: В «системе вознаграждения» найдены нейроны, возбуждающиеся от хороших предчувствий, «Элементы», 10.02.2012).
Мышей научили с помощью рычага самостоятельно стимулировать дофаминергические нейроны VTA. Нажатие на один из двух рычагов активировало серию лазерных импульсов — 30 пачек по 5 сигналов длительностью 4 мс каждый, частота сигналов в пачке составляла 20 Герц. Второй рычаг не был связан с лазером и использовался в качестве контроля. Этого хватало, чтобы активировать дофаминергические нейроны, содержащие ченнелродопсин. Сначала для запуска стимуляции требовалось одно нажатие на рычаг, через несколько дней — два, а чуть позже — и вовсе три. Все 109 животных, участвовавших в эксперименте, за 15 дней обучились трижды нажимать на рычаг, притом только в те моменты, когда в экспериментальной камере загорался свет. Вспышки света длились по секунде и, если животное нажимало на рычаг после десяти вспышек, лазер не активировался. Исследователи измеряли время (грубо говоря, количество вспышек света), через которое мышь заключительный раз нажмет на рычаг. Чем быстрее грызун это делал, тем более сильной считалась его мотивация к самостимуляции.
Сколько бы мышь ни нажимала на рычаг, во время обучения за сутки можно было получить оптогенетическую стимуляцию только 80 раз. Затем это число снижали до 40 на три дня, а после в течение четырех дней подавали на решетчатый пол экспериментальной камеры ток силой 0,25 мА и длительностью 500 мс каждый третий раз, когда мышь нажимала на рычаг, — то есть непосредственно перед получением награды (рис. 2). Этого хватает, чтобы отбить у животных тягу нажимать на педаль ради получения питательного и приятного на вкус раствора сахарозы.

Рис. 2. Протоколы стимуляции лазером и электрическими импульсами. Слева — во время обучения оптогенетической самостимуляции дофаминергических нейронов VTA, справа — после периода обучения. В этом случае, когда свет загорался третий раз (то есть появлялся сигнал, что надо еще раз нажать на рычаг), мышь било током (foot shock). LS — laser stimulation, стимуляция лазером. Time-out — время, в течение которого нажатие на рычаг не приводило к стимуляции лазером. Cue light — вспышки света, служащие сигналом, что пора нажимать на рычаг. Время указано в секундах. Изображение из обсуждаемой статьи в Nature
Удары током снизили у всех животных желание нажимать на рычаг в третий раз: время от первой вспышки до нажатия увеличилось, а некоторые вообще перестали его производить. Однако значительный процент особей продолжал с частотой не ниже 60% от изначальной нажимать на рычаг и третий раз невзирая на электрошок. Таких «упорных» оказалось 62,9% среди самок и 57,4% среди самцов. У них сформировалась устойчивая зависимость от оптогенетической стимуляции дофаминергических нейронов VTA. По скорости обучения невозможно было предсказать, у кого такая зависимость проявится.
Следующим шагом ученые картировали нейронные связи, обеспечивающие это явление. Из предыдущих исследований было известно, что приятные стимулы повышают концентрацию дофамина и в орбитофронтальной коре (OFC), поэтому ученые ввели группе мышей в эту область мозга краситель — ченнелродопсин Chrimson с красным флуоресцентным белком tdTomato, способный распространяться по отросткам нейронов в том же направлении, что и изменение мембранного потенциала (электрические сигналы). При оптогенетической стимуляции VTA часть красителя перемещалась из орбитофронтальной коры на нейроны дорсального стриатума — хотя напрямую эти клетки не были связаны с вентральной областью покрышки (рис. 3).
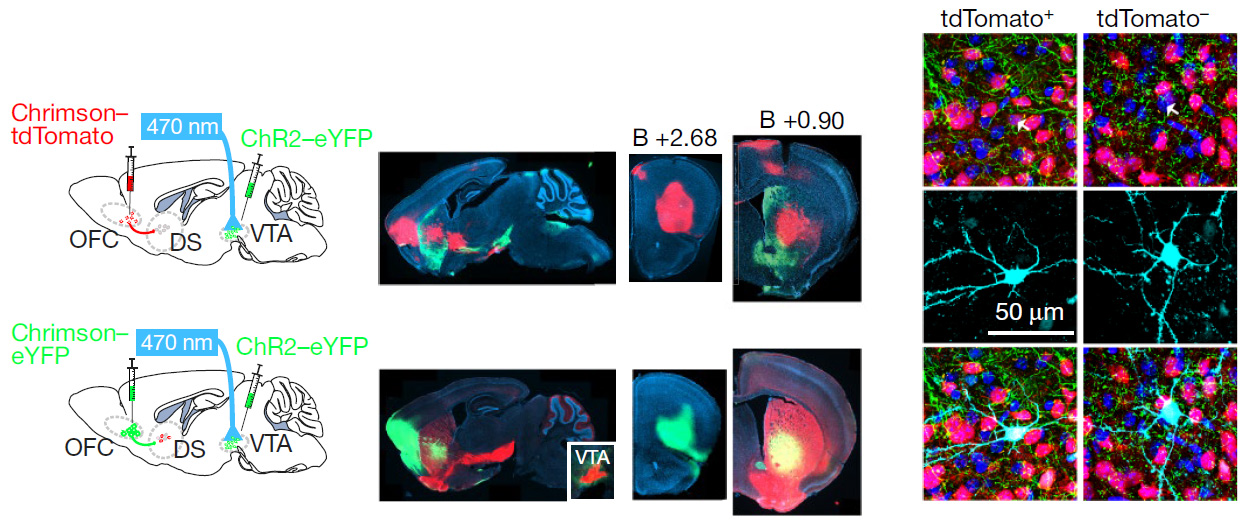
Рис. 3. Отслеживание связей орбитофронтальной коры, обеспечивающих устойчивую зависимость от оптогенетической стимуляции VTA. DS — дорсальный стриатум (дорсальная часть полосатого тела). tdTomato+ — мыши с красителем tdTomato, tdTomato− — без него. Остальные обозначения как на рис. 1. Изображение из обсуждаемой статьи в Nature
После обнаружения связей, потенциально обеспечивающих устойчивую аддикцию, нейробиологи сделали срезы головного мозга мышей так, чтобы на них присутствовали и клетки OFC, и нейроны дорсального стриатума. Известно, что на их мембранах есть рецепторы к нейромедиатору глутамату, который у взрослых млекопитающих чаще всего играет роль возбуждающего. Два типа глутаматных рецепторов, AMPA и NMDA, играют важную роль в синаптической пластичности — изменению возбудимости нейронов в ответ на различные стимулы в зависимости от предыдущих событий и контекста. Соотношение AMPA- и NMDA-рецепторов в клетках орбитофронтальной коры и дорсального стриатума могло влиять на стойкость зависимостей у мышей.
Оказалось, что до обучения самостимуляции соотношение двух типов рецепторов к глутамату у мышей не отличается. То же верно и для животных, которым стимулировали VTA и били лапы током, но не связывали эти две процедуры. Затем доля AMPA-рецепторов вырастала у грызунов, сформировавших стойкую зависимость от оптогенетической активации VTA. Кроме того, эксперименты, в которых в дорсальную часть полосатого тела или в орбитофронтальную кору вводили ингибиторы рецепторов к глутамату, показали: без работы AMPA- и NMDA-рецепторов в этих областях мозга стойкая зависимость вообще не формируется. А дополнительная активация глутаматергических клеток в тех же регионах приводила к обратному результату: аддикция вырабатывалась быстрее и была сильнее, то есть ток почти не мешал мышам себя стимулировать.
Таким образом, выяснилось, что за формирование устойчивой аддикции — по крайней мере, к прямой стимуляции дофаминергических нейронов VTA, одной из важнейших структур «системы вознаграждения», — отвечают связи орбитофронтальной коры и дорсального стриатума. Их силу определяет соотношение двух типов рецепторов — AMPA и NMDA — к глутамату, но оно меняется уже после того, как животному предъявили стимул для выработки зависимости, а заранее вероятность формирования такой зависимости предсказать не выходит.
Описанные результаты не во всем согласуются с полученными ранее сведениями из исследований с применением кокаина. В частности, к кокаину аддикция, при которой животное продолжает стимулировать себя несмотря на сильную боль, формируется в 20% случаев, а при оптогенетической стимуляции вентральной области покрышки, как мы теперь видим, — примерно в 60%. С высокой долей вероятности это связано с тем, что кокаин и непосредственная активация нейронов действуют на метаболизм дофамина неодинаково. Тем не менее, влияние дофамина в данном случае вряд ли прямое: нейронные связи стриатума и VTA слабые, поэтому очень низка вероятность, что оптогенетическая стимуляция VTA вызвала сильный выброс дофамина в области связей полосатого тела и орбитофронтальной коры.
Но если неожиданно высокий процент пристрастившихся к оптогенетической самостимуляции можно объяснить различиями в методике, то причину разделения мышей на две группы по силе их аддикции таким образом найти не получается. Все подопытные были крайне близки генетически и происходили из одной линии, в которой более десяти поколений подряд проводили скрещивания только с особями определенного генотипа. Авторы предлагают только одно, притом весьма размытое, объяснение различиям в реакции зависимых грызунов на боль — особенно учитывая, что по болевой чувствительности эти мыши не отличались. Это так называемая стохастическая индивидуальность — различия в поведении организмов, которые невозможно заранее предсказать на основе измеримых параметров (см.: K. Honegger & B. De Bivort, 2018. Stochasticity, individuality and behavior).
Считается, что такие различия вызываются внешней средой и представляют собой, по сути, неодинаковую реакцию на различные события извне. Для нас особенно важно, что они не наследуются, а значит, искать гены более и менее стойких к зависимостям бесполезно — по крайней мере, в случае, описанном в статье. С точки зрения биомедицинской этики это хорошо: получается, нет врожденных наркоманов — и нет повода для дискриминации. С точки зрения биомедицины — не слишком: невозможно заранее предсказать, кто излечится от зависимости, пусть бы даже и шоковым методом.
Источник: Vincent Pascoli, Agnès Hiver, Ruud Van Zessen, Michaël Loureiro, Ridouane Achargui, Masaya Harada, Jérôme Flakowski & Christian Lüscher. Stochastic synaptic plasticity underlying compulsion in a model of addiction // Nature. 2018. V. 564. P. 366–371. DOI: 10.1038/s41586-018-0789-4.
См. также дополнительные данные к обсуждаемой статье статье:
Christian Lüscher. Stochastic synaptic plasticity underlying compulsion in an addiction model
Светлана Ястребова
-
Как-то это странно называть зависимость устойчивой только потому, что часть индивидов не боится боли так, как её боятся другие. Возможно тех индивидов, что не боятся боли, надо "уговаривать" другими способами, искать другие пути балансировки нейронов. Построили бы коннектом этих индивидов и откорректировали бы их поведение через другие связи.
А с точки зрения биомедицинской этики для людей уже есть положительные корреляционные зависимости между скажем алкоголизмом и некоторыми SNPшками, поэтому вывод статьи довольно сомнительный, и это журнал Nature. Да уж(


Насколько я понял оно касалось в первую очередь механизмов формирования зависимости, а не выявления причин различия в таковых. Поэтому авторы коснулись лишь наиболее просто выявляемого - наличия наследственных механизмов. Которых не нашли (что отнюдь не означает, что их нет).
А анализ поведенческих причин этой самой стохастичности, я так понимаю, они и не планировали.
Последние новости



Рис. 1. Схема расположения оптических волокон для самостимуляции мышей. VTA (ventral tegmental area) — вентральная область покрышки, ChR2-eYFP — рецептор (ченнелродопсин-2), активируемый светом с длиной волны 470 нм, и связанный с ним желтый флуоресцентный белок. В центре: дофаминергические нейроны, несущие ChR2-eYFP, на продольном срезе головного мозга мыши окрашены в светло-зеленый благодаря наличию флуоресцентного белка. Справа: поперечный срез через место введения оптических волокон (показаны пунктиром), окраска тирозингидроксилазой — ферментом, выявляющим дофамин (бело-розовый). В — брегма, центральная точка на черепе, указано расстояние от нее в миллиметрах, то есть срез проведен на 3,08 мм позади брегмы. Изображение из обсуждаемой статьи в Nature