У эукариот появились ещё два предка
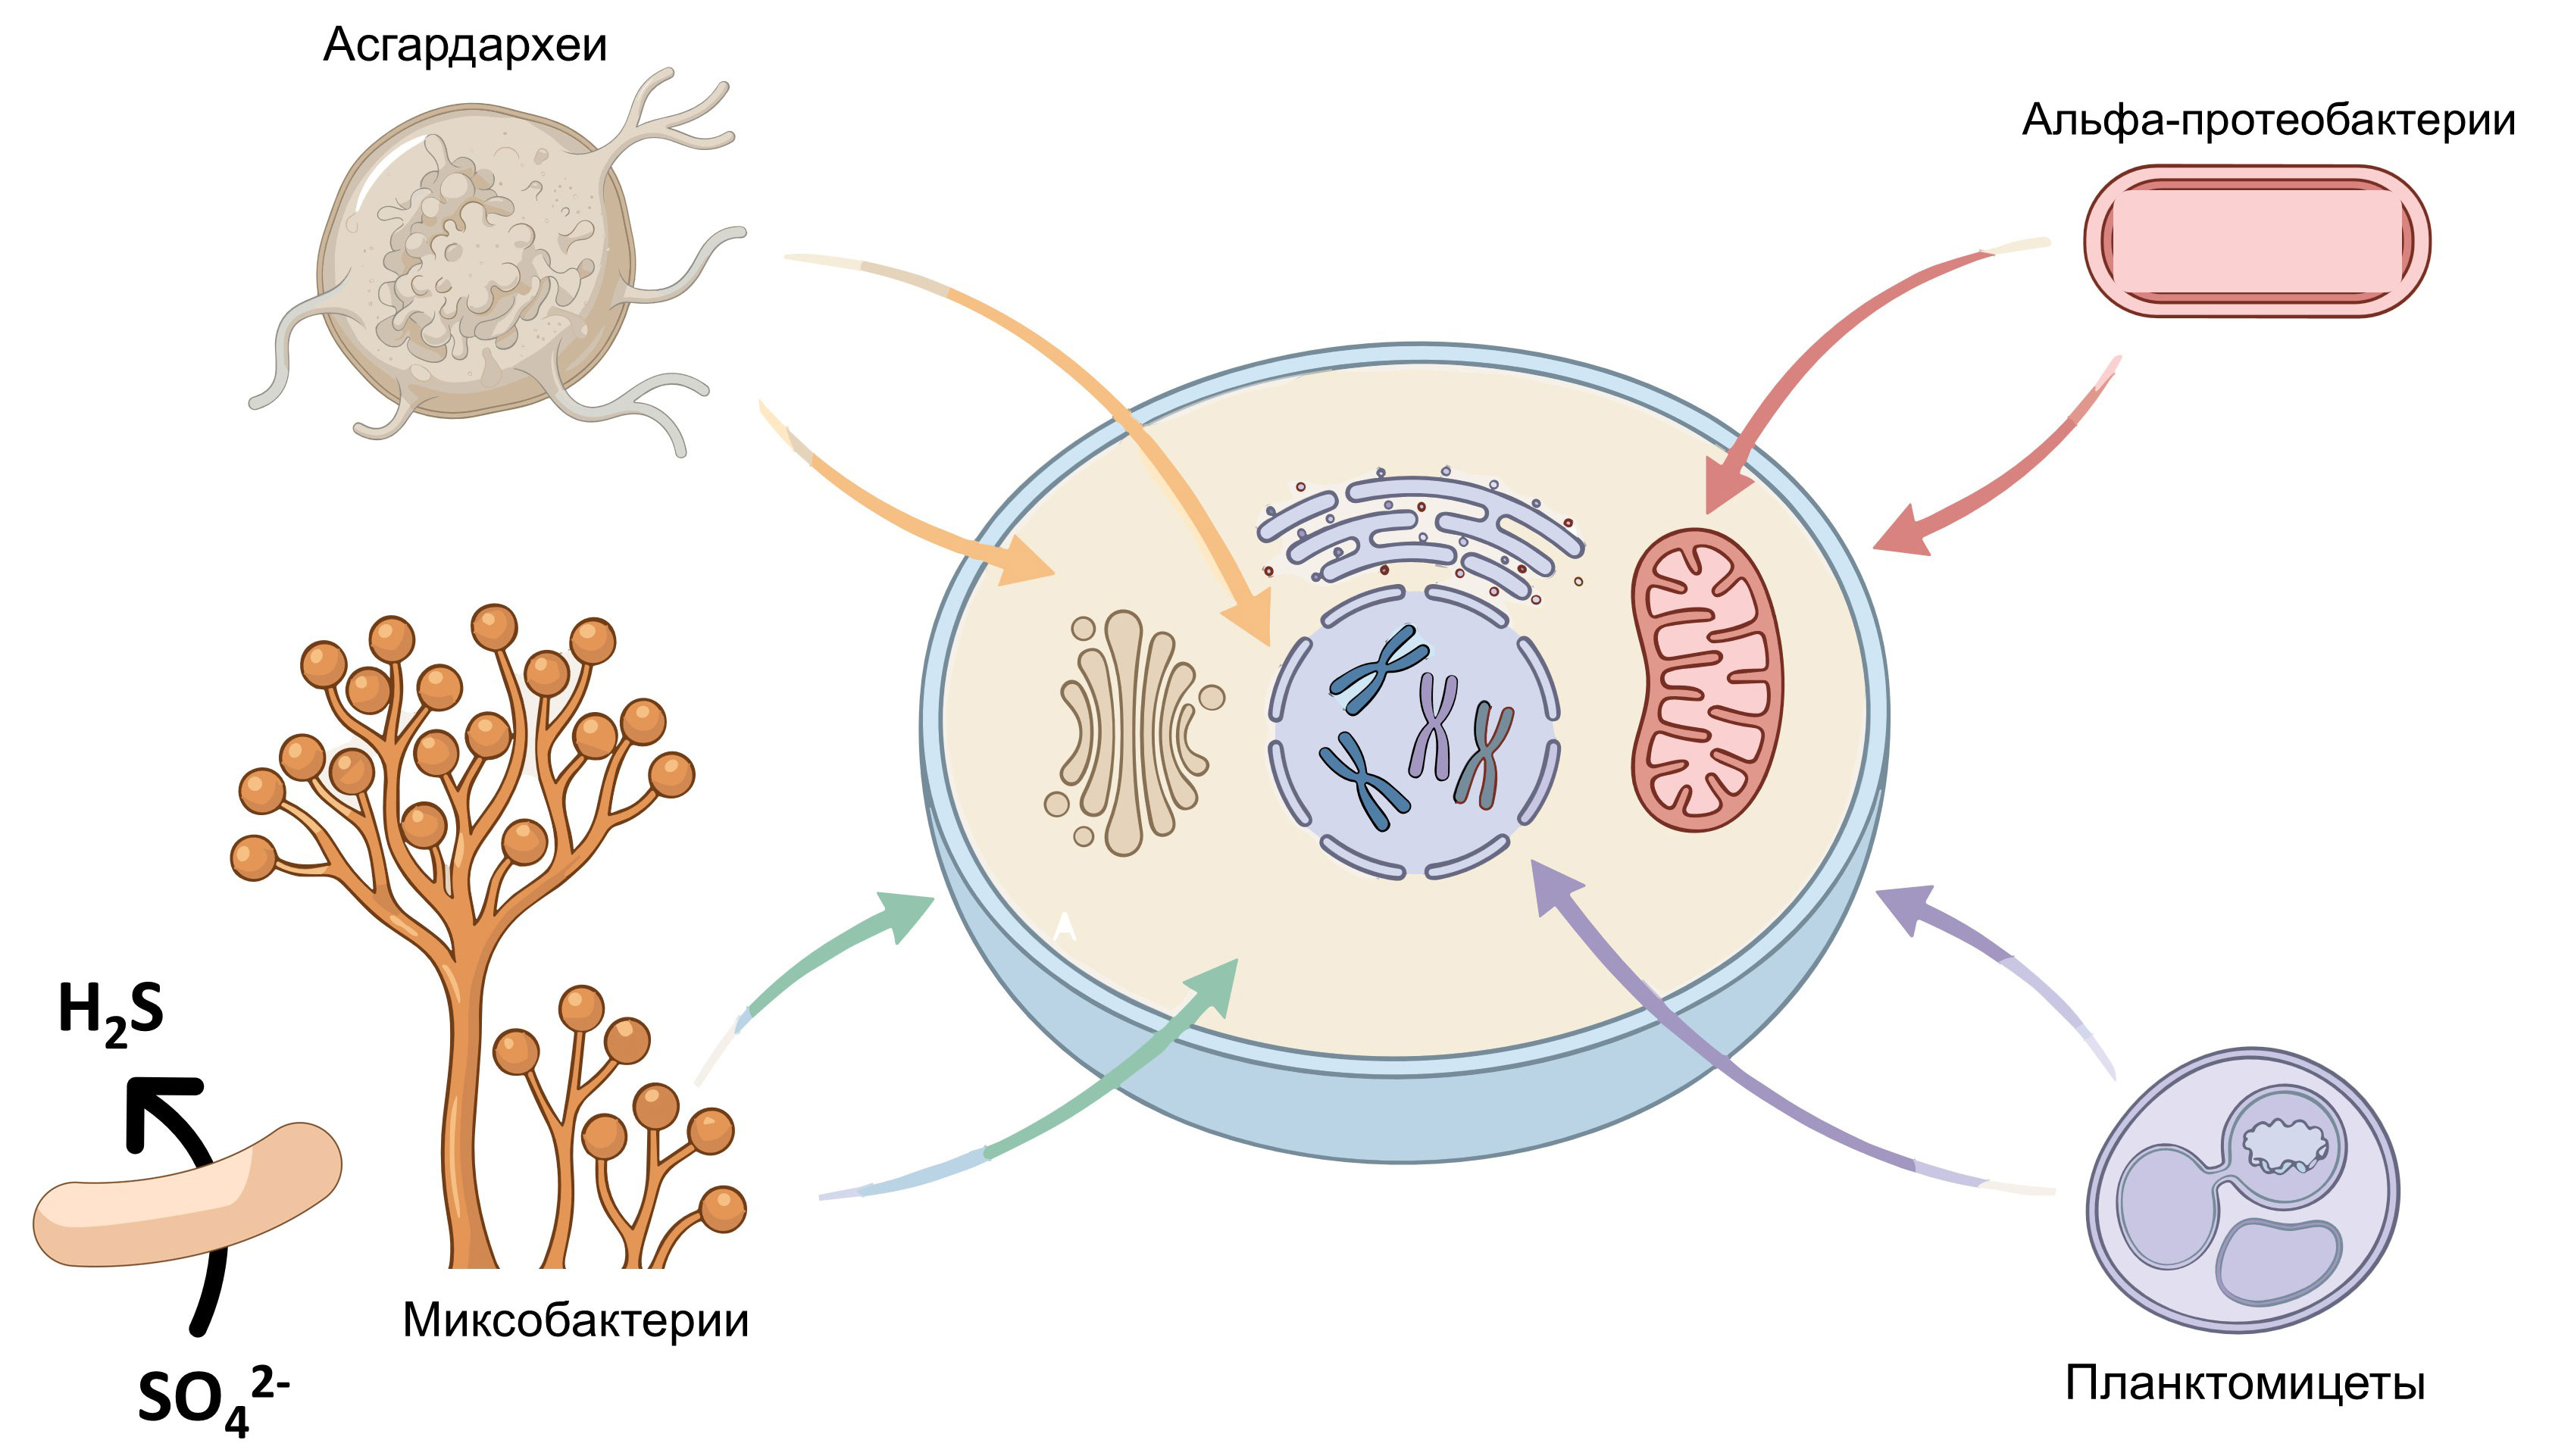
Происхождение эукариот остаётся в биологии дискуссионной темой: были предложены разные модели, но чаще всего они базировались на косвенных данных. Группа исследователей из Барселоны реконструировала протеом LECA — последнего общего предка всех эукариот — и вычислила, от каких групп организмов происходят его белки. Среди этих прокариотических предков предсказуемо оказались археи и альфа-протеобактерии, но наряду с ними — совершенно неожиданно — также миксобактерии и планктомицеты. И если наличие миксобактериального предка по крайней мере хорошо согласуется с гипотезой двойного эндосимбиоза, то участие планктомицетов в эукариогенезе оказалось для всех полным сюрпризом. Их массивный генетический вклад ставит вопрос о возможном заимствовании у них эукариотами решений для компартментализации клетки.
Происхождение эукариот — организмов с оформленным клеточным ядром и сложным строением клетки с разделением её на «отсеки» — один из горячо обсуждаемых вопросов современной биологии. Уже можно с уверенностью говорить, что эукариотические клетки — это химеры, «собранные» из нескольких прокариот. Известно также, что одним из предков была архея из группы асгардархей, у которых уже есть некоторые сходства с эукариотами — см. У асгардархей обнаружен сложный актиновый цитоскелет, «Элементы», 09.01.2023. Вторым предком, давшим начало митохондриям, стала какая-то альфа-протеобактерия.
Уже здесь начинаются дебаты. До сих пор, например, не ясно, какая именно альфа-протеобактерия. В слегка устаревших учебниках и популярном сознании укоренилась гипотеза о связи митохондрий с внутриклеточными паразитами риккетсиями — однако, по всей видимости, это лишь артефакт филогенетического анализа, а ближайшие современные родственники митохондрий живут вовсе не в чужих клетках, см. Ближайшими родственниками митохондрий могут быть бактерии из горячих источников, «Элементы», 03.10.2023. Но самое главное — до конца не ясно, было ли в этом симбиозе только два партнёра. Только из двух прокариот модель эукариогенеза не «собирается» — остаётся непонятным, почему у эукариот мембраны бактериального, а не архейного типа и почему предположительно анаэробная архея связала свою жизнь с заведомо аэробным предком митохондрий.
Так появилась модель, где эукариоты появляются как симбиоз не двух, а трёх партнёров — гипотеза двойного эндосимбиоза. На роль третьего (но отнюдь не лишнего!) предлагается некая дельта-протеобактерия. В последнее время появляется всё больше свидетельств в пользу такого сценария. Например, группе Евгения Кунина удалось установить, что вирусы эукариот происходят от вирусов бактерий, а не архей (см. Эукариотические клетки могли возникнуть в результате двойного эндосимбиоза, «Элементы», 10.07.2023). Это плохо согласуется с гипотезой об архейном происхождении эукариотической клетки — зато если предположить, что внешние мембраны и цитоплазма произошли от какой-то третьей бактерии, то всё становится на свои места.
Все эти доказательства оставались в значительной степени косвенными. Группа исследователей из Барселоны решила обратиться к самым прямым данным, которые доступны на сегодняшний день — последовательностям ДНК и белков — и выяснить, из наследия каких прокариот генетически «состоят» эукариоты. Результаты, опубликованные в журнале Nature, оказались неожиданными: геномы нынешних эукариот несут чёткий сигнал не двух, а четырёх прокариотических предков (рис. 1).
По белкам современных эукариот исследователи реконструировали, какие белки могли быть у их последнего общего предка — LECA, Last Eukaryotic Common Ancestor. (Просим не путать с LUCA, про реконструкцию которого мы писали ранее, см. LUCA стал древнее и при этом сложнее, «Элементы», 02.09.2024 и Универсальные паралоги помогают составить «портрет» LUCA, «Элементы», 24.04.2026). Получился организм, похожий на современных одноклеточных эукариот — гетеротрофный и аэробный (рис. 2). Вероятно, он был хищником и охотился на бактерий.

Рис. 2. Карта метаболических путей LECA, реконструированная исследователями. Всем, кто изучал биохимию, она покажется смутно знакомой: большой круг в центре — это не что иное, как цикл Кребса, а меньший круг справа — цикл мочевины. В большом масштабе все пути (не в реконструкции для LECA, а вообще существующие в природе), приведены на сайте KEGG. Карту для LECA можно без труда спроецировать на большую схему и изучить подробнее, а также сравнить с аналогичной картой для LUCA из нашей статьи LUCA стал древнее и при этом сложнее, «Элементы», 02.09.2024. Рисунок из обсуждаемой статьи
Далее учёные вычислили ближайших «родственников» генов LECA среди прокариот. При этом пришлось применить целый ряд статистических фильтров, чтобы случайно не взять в расчёт недавние горизонтальные переносы генов (они к происхождению LECA отношения точно не имели) и не попасться на другие артефакты молекулярной филогенетики типа притяжения длинных ветвей. Здесь кроется самый интересный момент: пороги значимости учёные настроили таким образом, чтобы они были максимально строгими, но гарантированно подтверждали две группы вероятных предков — архей и альфа-протеобактерий. Так как эти группы априори причисляются к предкам эукариот, то они рассматривались как предки bona fide — которые точно должны пройти порог, иначе он просто плохо откалиброван.
Оказалось, что при такой настройке вместе с археями и альфа-протеобактериями порог проходят ещё две группы прокариот: планктомицеты и миксобактерии. Их генетический вклад в формирование LECA (и всех эукариот) оказался сопоставимым с вкладом асгардархей и предков митохондрий. В генетическим плане LECA выглядел как «собранный» не из двух, а из четырёх прокариот.
Миксобактерия (представитель филума Myxococcales) среди предков эукариот может показаться сюрпризом. Современные миксобактерии — это социальные организмы со способностью формировать многоклеточные плодовые тела (рис. 3), и очень сложно представить себе такого «бактериального слизевика» в то время и в тех условиях древней Земли, когда формировались эукариоты. Однако на самом деле этот момент подтверждает теорию двойного эндосимбиоза.

Рис. 3. Плодовые тела бактерии Myxococcus xanthus — типового представителя миксобактерий — состоят из множества клеток, собравшихся вместе для образования многоклеточного организма (такой тип многоклеточности называется агрегативным). Фото: Michiel Vos из статьи Antisocial Behavior in Cooperative Bacteria (or, Why Can't Bacteria Just Get Along?) // PLoS Biology, 2005
Когда была впервые опубликована синтрофная гипотеза (см. Предложена новая гипотеза происхождения эукариот, «Элементы», 07.05.2020) — ныне господствующая модель двойного эндосимбиоза — миксобактерии ещё не выделялись в самостоятельный филум. Их относили к дельта-протеобактериям вместе с сульфатредуцирующими бактериями вроде Desulfovibrio (того самого, который был замечен в причастности к болезни Паркинсона, см. Кишечная сульфатредуцирующая бактерия может передать болезнь Паркинсона от человека к нематоде, «Элементы», 02.06.2023). И именно дельта-протеобактерия фигурировала в синтрофной гипотезе как вероятный «третий партнёр» (точнее, хронологически скорее второй, см. рис. 4). Так что с поправкой на версии таксономии предсказания синтрофной гипотезы вроде бы сходятся с биоинформатическими находками испанских исследователей. С той лишь оговоркой, что обнаруженный сигнал оказался связан именно с новообразованным филумом Myxococcota, а не с условным Desulfovibvrio, что было бы более ожидаемо.

Рис. 4. Схема сценария «двойного эндосимбиоза»: архея образует симбиоз с дельта-протеобактерией, которая её полностью окружает и даёт начало цитоплазме. Затем к этому симбиозу присоединяется альфа-протеобактерия, впоследствии эволюционировавшая в митохондрию. Рисунок Георгия Куракина
Впрочем, у этой загадки уже есть решение: филум Myxococcota включает в себя не только красивых социальных миксобактерий, но и живущих в горячих источниках бактерий-сульфатредукторов, открытых совсем недавно (Chelsea L Murphy et al., 2021. Genomes of Novel Myxococcota Reveal Severely Curtailed Machineries for Predation and Cellular Differentiation). Вероятно, кто-то из них и стал тем самым «дельта-протеобактериальным» предком из синтрофной гипотезы. Любопытно, что ближайшие нынешние родственники митохондрий тоже живут в горячих источниках — что прозрачно намекает на условия формирования LECA.
Вклад миксобактериальных генов согласуется с гипотезой двойного эндосимбиоза и может рассматриваться как генетический след «третьего предка». Это дополнительно подтверждается также относительной хронологией переноса генов, реконструированной авторами: «миксобактериальный» предок появляется довольно поздно и почти одновременно с предком митохондрий, в то время как генетический след архейного предка выглядит старше — как будто он вошёл в процесс объединения на самой ранней стадии. В синтрофной гипотезе так и должно быть, но теперь уже планктомицеты оказываются «четвёртым лишним».
Во-первых, ни в одной из современных моделей эукариогенеза они не фигурируют. Это как деталь пазла, которая в наборе точно есть, но никуда не вставляется. И датировка вклада плактомицетных генов ещё более неожиданная: этот приток оказывается ранним и по времени близким ко вкладу архейного предка.
Сразу оговорюсь, что у авторов рассматриваемой статьи подробных обсуждений этого предка нет. Но биологический контекст выглядит довольно очевидным: планктомицеты известны как «бактерии с клеточным ядром». На самом деле, конечно, это не ядро: впячивание мембраны, окружающее ДНК планктомицетов, топологически открыто, и разделения транскрипции с трансляцией нет — РНК спокойно перемещается из «ядра» и в «ядро». Даже серная бактерия Thiomargarita magnifica в этом отношении гораздо более похожа на эукариот, чем планктомицеты: см. Альтернативная эволюция: сложные формы жизни на основе гигантских серных бактерий, «Биомолекула», 24.11.2025. Тем не менее, само существование компартментализации клетки у планктомицетов делает их вклад в эволюцию эукариот очень интересным.
Планктомицеты — пример «ошибочного» названия в истории науки. Когда венгерский биолог Надор Гимеши открыл их в 1924 году, он заметил прикрепление к субстрату тонким стебельком (у того штамма, с которым он работал) и картину «почкования» при делении (см. Odilon D Kaboré et al., 2020. Planctomycetes as Host-Associated Bacteria: A Perspective That Holds Promise for Their Future Isolations, by Mimicking Their Native Environmental Niches in Clinical Microbiology Laboratories). Он решил, что имеет дело с грибом, и назвал новый организм Planctomyces — «планктонный (плавающий) гриб». И только дальнейшие исследования показали, что это не гриб, а бактерия. Но название менять было уже поздно.
Могли ли они поделиться с будущим LECA «рецептами» этой компартментализации? Если посмотреть на приведённые барселонскими биологами функциональные аннотации генов от разных предков, вошедших в геном LECA (рис. 5), то такое предположение точно не получится сбросить со счетов. Эти данные выглядят абсолютно правдоподобными: согласно им, археи подарили нам цитоскелет (выше я писал, что у асгардархей он есть) и аппарат транскрипции и трансляции (он у эукариот и правда архейного типа). Предок митохондрий отличился вкладом в энергетический метаболизм (абсолютно ожидаемо) и в клеточный цикл (и ныне митохондрии запускают апоптоз). Миксобактериальный предок — «третий партнёр» в двойном эндосимбиозе — принёс с собой широкий спектр функций от метаболизма липидов до подвижности клетки (что тоже ожидаемо). А чем нас наградил планктомицет? Во-первых, от него нам досталась часть генов, связанных с транскрипцией и процессингом РНК. А во-вторых и в главных, гены, связанные с биогенезом клеточных мембран.
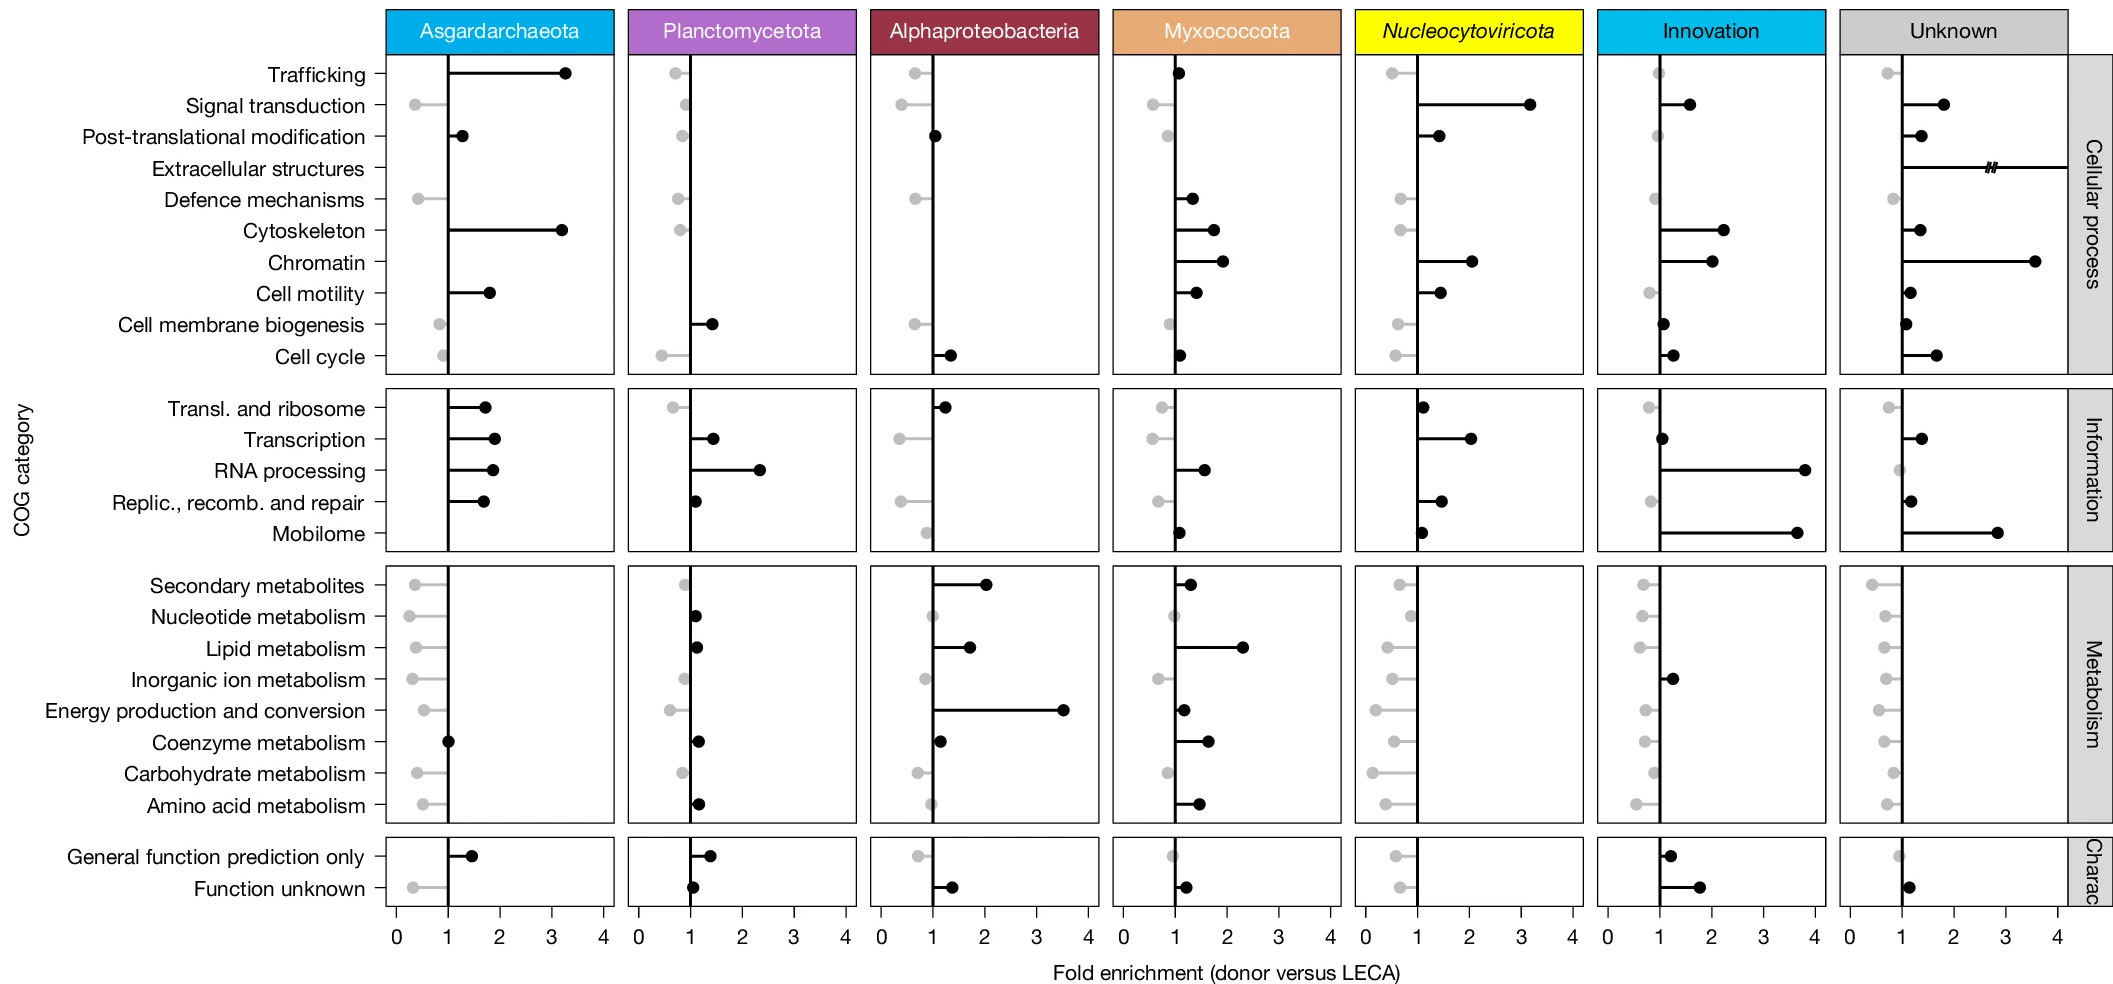
Рис. 5. Разные прокариотические предки передавали будущим эукариотам гены разного функционального профиля. В этой таблице чёрными отрезками справа от вертикальных линий показано, генами с какой функцией были обогащены «порции», доставшиеся LECA от того или иного предка (включая вирусы, а также гены неизвестного происхождения и появившиеся de novo). Чем длиннее отрезок на пересечении строки и столбца таблицы, тем больше генов с функцией из заголовка строки среди генов, чьё происхождение указано в заголовке столбца. Серые отрезки слева от вертикальных линий, наоборот, показывают обеднение «порции» определёнными генами; для интерпретации результатов исследования они не так важны — по крайней мере, пока не появились новые вопросы к тем же данным, что иногда бывает! Рисунок из обсуждаемой статьи
Биогенез клеточных мембран и работа с РНК — действительно важные для компартментализации «навыки» клетки. Не исключено, что неизвестный плактомицет «поделился» ими с архейным предком эукариот, пока у того ещё и митохондрий не было. Получается, что обрести ядро эукариотам помогли планктомицеты — ну и кто тут теперь не настоящая клетка с ядром!?
Если резюмировать всё вышесказанное, то происхождение эукариот оказывается не только многокомпонентным, но и растянутым во времени. Скорее оно было не уникальным скачком, а цепочкой инноваций, где каждая предыдущая определяла следующую. А однократная механическая «сборка» протоэукариота из нескольких прокариот в новой парадигме уступает место серии эндосимбиозов и горизонтальных переносов генов.
У этих горизонтальных переносов, по всей видимости, был мощный драйвер в лице вирусов. Для некоторых генов LECA ближайшие сестринские последовательности обнаружились у гигантских вирусов типа Nucleocytoviricota. К этому типу, в частности, принадлежат вирусы африканской чумы свиней и вирусы оспы (включая нашумевшую оспу обезьян). И если генетический вклад бактерий указывает на участников процесса эукариогенеза, то генетический вклад вирусов демонстрирует, кто «носил гены» между ними.
В предыдущей новости об эволюции осмотрофных эукариот (см. Грибы и еще три группы эукариот помогали друг другу развить осмотрофное питание, обмениваясь генами, «Элементы», 06.08.2026) мы уже обсуждали возможную роль вирусов в эволюции. Но в этот раз биоинформатические улики куда значимее. В каком-то смысле мы все появились, потому что древняя архея когда-то заболела не менее древней оспой. А в итоге в нас живёт гораздо больше предков, чем мы ранее предполагали.
Источник: Moisès Bernabeu, Saioa Manzano-Morales, Marina Marcet-Houben & Toni Gabaldón. Gene ancestries reveal diverse microbial associations during eukaryogenesis // Nature. 2026. V. 656, pp. 399–405.
Георгий Куракин
Последние новости


Рис. 1. С генетической точки зрения эукариотическая клетка «собрана» не из двух, а из четырёх прокариот, среди которых неожиданно оказались бактерии с подобием клеточного ядра и родственник многоклеточных бактерий из лесной подстилки. Рисунок выполнен с использованием сервисов FigureLabs и NIH BioArt