Последние выпуски
- Том 87, № 4. Июль-август 2026
- Том 87, № 3. Май-июнь 2026
- Том 87, № 2. Март-апрель 2026
- Том 87, № 1. Январь-февраль 2026
Как устроена подводная морская растительность в умеренных и высоких широтах?
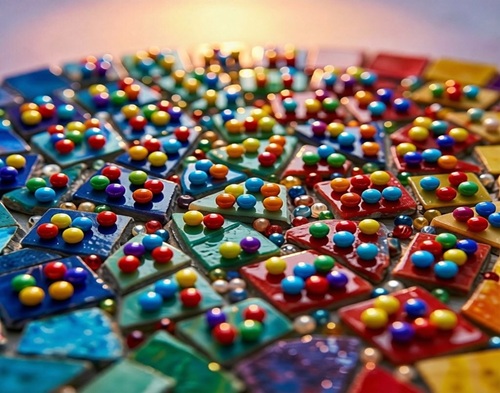
В Хабаровском филиале ВНИРО изучили, как устроена морская растительность - сообщества макроскопических водорослей и морских трав на мелководьях Японского и Охотского морей. Оказалось, что они разделены хорошо выраженными границами, а в каждом сообществе есть только один главный вид, который занимает большую часть пространства и создаёт основную биомассу. Остальные виды распределены случайно и не образуют устойчивых групп. Это похоже на мозаику с рассыпанным по ее поверхности бисером, где кусочки мозаики — это сообщества, а случайно разбросанные бусины — виды. Такая структура хорошо объясняется концепцией адаптивной зоны, говорящей о количественном преобладании в сообществе того вида, который лучше всего приспособлен к условиям данного участка растительности. Полученные результаты помогут лучше классифицировать и оценивать ресурсы морской растительности в районах умеренных и высоких широт.
Морское дно у берегов Дальнего Востока России покрыто густыми «подводными лесами» — зарослями водорослей и морских трав. Эти организмы служат домом для множества животных, участвуют в круговороте веществ и имеют хозяйственное значение. Однако до недавнего времени учёные почти не знали, как именно устроены сообщества подводной морской растительности: есть ли у них чёткие границы, связаны ли виды друг с другом или же они просто растут вместе случайно.
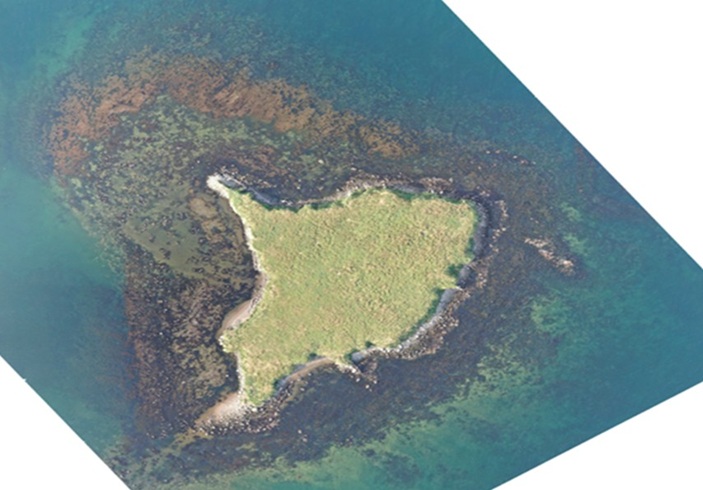
Чтобы разобраться в этих вопросах, исследователь Александр Дуленин из Хабаровского филиала ВНИРО провёл масштабную работу. Он собрал данные с 2008 по 2022 год в двух районах: в северо-западной части Японского моря (600 км побережья, 710 станций) и в северо-западной части Охотского моря (1000 км, 5183 станции). Наблюдения велись на глубинах от 1 до 22 метров. Учёный использовал водолазные погружения, различные средства подводного видеонаблюдения и даже беспилотники, которые делали аэрофотоснимки с высоты 200–500 метров. Это позволило увидеть границы растительных поясов с высоты птичьего полёта (рис. 1).
Оказалось, что сообщества (фитоценозы) имеют довольно чёткие границы. Переходные зоны, где в относительно равной степени присутствуют доминанты соседних сообществ, занимают лишь 12–32% площади растительного покрова дна. На остальной площади в каждом фитоценозе явно преобладает один вид. Множества однородных фитоценозов традиционно называют ассоциациями растительности. В обследованных районах они названы по главному господствующему виду, например, Zosteretum asiaticae - ассоциация морской травы зостеры азиатской или Saccharinetum japonicae – ассоциация сахарины японской.
Затем исследователь проверил, существуют ли внутри ассоциаций комплексы взаимосвязанных видов. Для этого он оценивал постоянство встречаемости — как часто тот или иной вид попадается в описаниях сообщества. Выяснилось, что постоянство 100% имеет только главный доминант. Остальные виды встречаются редко и без закономерностей. Среднее постоянство видов в ассоциациях Японского моря не превышало 39%, а в Охотском — 34%. Видовой состав разных ассоциаций оказался схож на 82–99%, а статистические тесты не выявили значимых различий. Иными словами, кроме главного вида, все остальные виды распределены случайно. Это типично для так называемых петерсеновских сообществ, названных в честь датского учёного К. Петерсена. В отличие от мёбиусовских сообществ, где виды прочно связаны друг с другом, петерсеновские — это случайный набор видов.
Учёный также обнаружил, что если ассоциации выделять менее, чем по 20 описаниям, список их видов будет неполным. После 20 описаний он стабилизируется. Это важный методический вывод: чтобы получить достоверную картину видового состава сообщества, нужно описывать не менее 20 его участков.
Главный результат исследования — в каждом сообществе есть единственный вид-доминант, который формирует большую часть обилия. В Охотском море на него приходится в среднем 74–75% биомассы и проективного покрытия, в Японском — 53–58%. За пределами своей ассоциации обилие этого вида резко падает — в 2,2–4,4 раза. Это значит, что доминант побеждает в конкуренции за субстрат только в подходящих для него условиях, а в других местах проигрывает.
Интересно, что при изменении условий среды ассоциации реагируют изменением своей площади: она может меняться в 2,2–6,4 раза. Но внутренние показатели обилия (например, удельная биомасса главного доминанта) остаются относительно стабильными — они меняются всего в 1,4–1,6 раза. То есть сообщество как бы «дышит»: расширяется или сжимается в пространстве, сохраняя внутреннюю однородность.
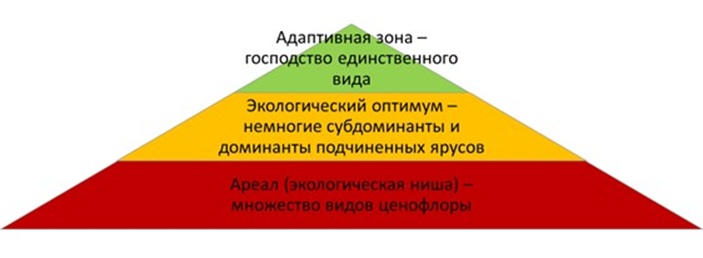
Почему же в каждом сообществе господствует только один вид? Учёный рассмотрел разные концепции: ареал, экологическую нишу, экологический оптимум. Для объяснения наблюдаемой картины доминирования лучше всего подошла концепция адаптивной зоны, предложенная эволюционистом Дж. Симпсоном и развитая российским учёным И.В. Волвенко. Адаптивная зона — это участок, где условия настолько благоприятны для конкретного вида, что он по биомассе и численности превосходит все остальные. Именно в такой зоне вид становится главным доминантом и формирует сообщество. Остальные виды, хотя и могут вполне успешно существовать в таком сообществе, однако не достигают максимальных показателей обилия. Эту идею можно представить в виде пирамиды (рис. 2): внизу — множество видов, чьи ареалы перекрываются; выше — экологический оптимум для некоторых из них; а на вершине — адаптивная зона единственного вида, который определяет облик и сложение сообщества.
Наглядно такую структуру можно сравнить с мозаикой, по которой рассыпан бисер (рис. 3). Кусочки мозаики — это фитоценозы (сообщества), уложенные закономерно, в соответствии с условиями среды. Отдельные бусины — это случайно встречающиеся в сообществах виды. Такой образ хорошо отражает суть модели: структуру каждого сообщества в наших умеренных и высоких широтах определяет не случайный набор видов, а единственный вид – экосистемный инженер, который создаёт его «каркас».
Практическое значение работы велико. Концепция адаптивной зоны позволяет рационально классифицировать морскую растительность, избегая излишнего дробления. Вместо того чтобы выделять множество «ассоциаций» по случайным сочетаниям видов, учёные могут описывать сообщества по их главному доминанту и естественным границам. Это упрощает картирование и оценку промысловых запасов водорослей и морских трав. Кроме того, исследование показало, что полученные закономерности справедливы и для холодных, и для умеренно-тёплых вод, а значит, концепцию можно применять в разных регионах России и мира.
Так, шаг за шагом, учёные раскрывают тайны подводных лесов. И хотя на первый взгляд может показаться, что в зарослях царит хаос, на самом деле там действуют чёткие правила: один вид захватывает подходящую территорию и становится хозяином, а остальные — лишь случайные гости. Понимание этих правил помогает нам лучше заботиться о морских экосистемах и разумно использовать их богатства.
Популярные синопсисы